01Алкалоїди в системі метаболізму рослин
Обмін речовин рослини традиційно ділять на первинний і вторинний. Первинні метаболіти — вуглеводи, протеїногенні амінокислоти, білки, ліпіди, нуклеотиди, проміжні продукти гліколізу й циклу Кребса — є в усіх живих клітинах і прямо забезпечують фотосинтез, дихання, ріст та поділ. Поняття «вторинні метаболіти» ввів Альбрехт Коссель у 1891 р. Сьогодні частіше говорять про спеціалізовані метаболіти: вони трапляються лише в окремих родинах, родах чи навіть хімічних расах одного виду, але виконують життєво важливі функції — захищають рослину, допомагають їй пристосуватися до середовища й «спілкуватися» з ним [1, 2].
За походженням і хімічною природою спеціалізовані метаболіти поділяють на три надкласи. Азотовмісні сполуки (центральне місце серед них посідають алкалоїди, а також ціаногенні глікозиди, глюкозинолати й непротеїногенні амінокислоти) становлять приблизно п'яту частину відомих вторинних метаболітів [3]. Терпеноїди будуються з C₅-одиниць ізопентенілпірофосфату й диметилалілпірофосфату (мевалонатний і пластидний MEP-шляхи), фенольні сполуки — із шикіматного й ацетат-малонатного шляхів (флавоноїди, лігніни, кумарини, дубильні речовини). У цій статті розглянуто лише алкалоїди.
Натискайте на блоки діаграми: вона показує, на які групи ділять алкалоїди і чому терпеноїдні та стероїдні «псевдоалкалоїди» лишаються за межами статті.
Де проходить межа? Так звані ізопреноїдні псевдоалкалоїди (аконітин, соланідин, таксол) — це готовий терпеноїдний чи стероїдний каркас, у який азот вводять на пізніх стадіях трансамінуванням; флавоалкалоїди поєднують алкалоїдний і флавоноїдний фрагменти. За способом утворення вуглецевого скелета вони належать до терпеноїдного чи фенольного обміну [1], тому тут розглядаються автентичні алкалоїди амінокислотного й пуринового походження (та полікетидний коніїн).
Чим алкалоїди відрізняються від первинних метаболітів
| Критерій | Первинні метаболіти (амінокислоти, цукри, ліпіди) | Алкалоїди (спеціалізовані азотовмісні метаболіти) |
|---|---|---|
| Фізіологічна необхідність | Абсолютно необхідні для росту клітин, поділу, дихання й фотосинтезу | Не беруть прямої участі в рості; забезпечують екологічне виживання виду |
| Поширення в таксонах | Універсальні для всіх рослин без винятку | Вузькоспецифічні: окремі родини, роди, хемотаксономічні лінії (10–25 % судинних рослин) |
| Форма азоту | Амінний та амідний азот у пептидах, вільних амінокислотах, нуклеїнових основах | Третинний або вторинний азот у гетероциклі, четвертинні амонієві катіони, N-оксиди або екзоциклічні аміни |
| Клітинна локалізація | Цитозоль, строма хлоропластів, матрикс мітохондрій, ядро | Центральна вакуоля (у вигляді солей органічних кислот), молочники, клітинна стінка |
| Біологічна активність | Субстрати метаболізму й будівельні блоки макромолекул; гостра нейротоксичність нехарактерна | Високоафінні ліганди рецепторів, іонних каналів, ферментів і ДНК тварин, комах та патогенів |
Раніше вважали, що алкалоїди — «шлаки» азотного обміну, які рослина без видільної системи скидає у вакуолі. Далі (розділ 11) ми побачимо, чому ця гіпотеза не витримала перевірки.
02Визначення, етимологія та історія
Алкалоїди (від пізньолат. alkali — луг, араб. al-qali — попіл рослин, та дав.-гр. εἶδος — подібний, тобто «лугоподібні») — велика, структурно різнорідна група природних низькомолекулярних азотовмісних органічних сполук переважно рослинного походження. Вони містять один або кілька атомів азоту (найчастіше в гетероциклі, рідше — в аліфатичному бічному ланцюзі), здебільшого виявляють основні властивості, синтезуються з амінокислотних або пуринових попередників і мають виразну, часто дуже специфічну фізіологічну дію на хребетних і членистоногих [4].
Ключові етапи вивчення алкалоїдів охоплюють понад два століття. Наведіть курсор на подію або натисніть її — з'являться подробиці.
Стрічка подій від виділення морфіну до реконструкції шляхів біосинтезу в дріжджах.
03Фізико-хімічні властивості
Хімічні й фізичні властивості алкалоїдів визначає неподілена електронна пара атома азоту та ступінь окиснення вуглецевого скелета.
3.1Склад, агрегатний стан, колір і флуоресценція
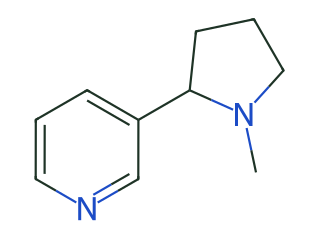
Більшість алкалоїдів складається з C, H, N та O (іноді S, дуже рідко Cl чи Br). Кисневмісні алкалоїди (морфін, хінін, атропін, стрихнін, резерпін, кофеїн) — тверді нелеткі безбарвні кристалічні або аморфні речовини без запаху, з різко гірким смаком. Безкисневі (нікотин, анабазин, коніїн, спартеїн, пахікарпін) — переважно безбарвні чи жовтуваті оліїсті рідини з різким запахом, які переганяються з водяною парою (цю властивість використовують для їх виділення), а їхні солі — тверді кристалічні речовини [3].
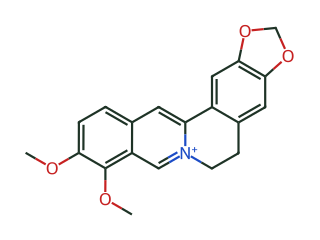
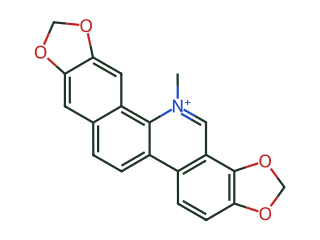
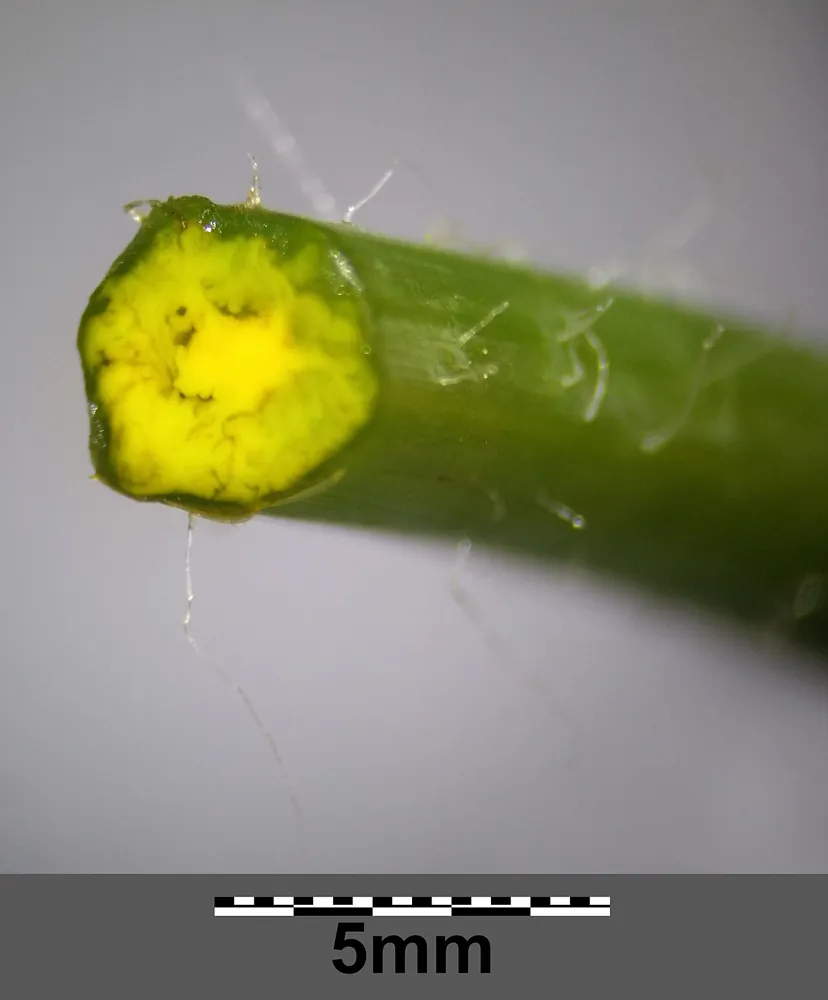
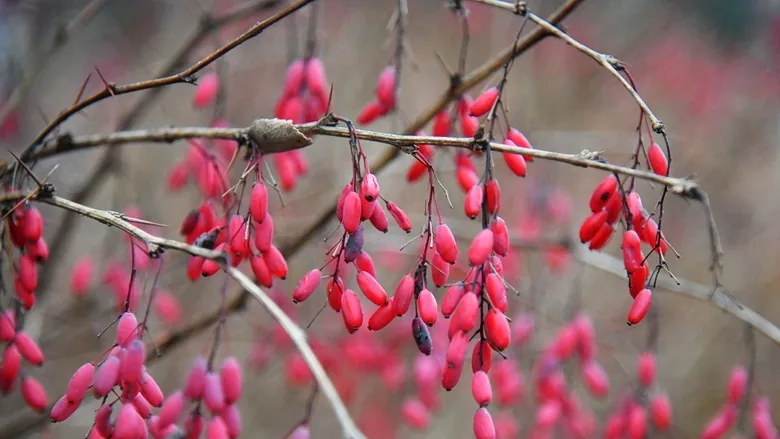
Сполуки з довгою системою спряжених подвійних зв'язків і четвертинним азотом забарвлені: берберин і хелідонін — яскраво-жовті, сангвінарин — оранжево-червоний, колхіцин — жовтуватий. В ультрафіолеті (254–365 нм) багато індольних, хінолінових та ізохінолінових алкалоїдів флуоресціюють: розчин сульфату хініну в розведеній сірчаній кислоті світиться блакитним, берберин — золотисто-жовтим.
3.2Основність, солі та N-оксиди
Сила основності залежить від гібридизації орбіталі азоту й сусідніх замісників (константи pKa спряженої кислоти):
Наведіть курсор на алкалоїд — побачите його pKa і частку катіонної форми за обраного pH. Перетягніть повзунок pH.
Найсильніші основи (pKa > 11) — четвертинні амонієві сполуки (берберин, сангвінарин, D-тубокурарин); сильні (8,5–10,5) — насичені гетероциклічні вторинні й третинні аміни (коніїн, тропан, спартеїн, лупінін); помірні (6,5–8,5) — морфін, хінін, папаверин, стрихнін; дуже слабкі (0,5–2) — пуринові алкалоїди (кофеїн, теобромін: електронна пара азоту делокалізована в ароматичній і карбонільній системі) та амідний колхіцин, який практично не утворює стійких солей з мінеральними кислотами. Для порівняння: константа основності кодеїну Kb ≈ 9·10⁻⁷, кофеїну — 4,1·10⁻¹⁴ [3].
Приєднуючи протон, азот утворює стабільні кристалічні солі; сильні луги (NaOH, KOH, аміак, карбонати) витісняють вільні основи з солей. Алкалоїди з фенольною –OH (морфін) у надлишку лугу утворюють водорозчинні феноляти, а складноефірні (атропін, кокаїн) при лужному гідролізі омиляються.
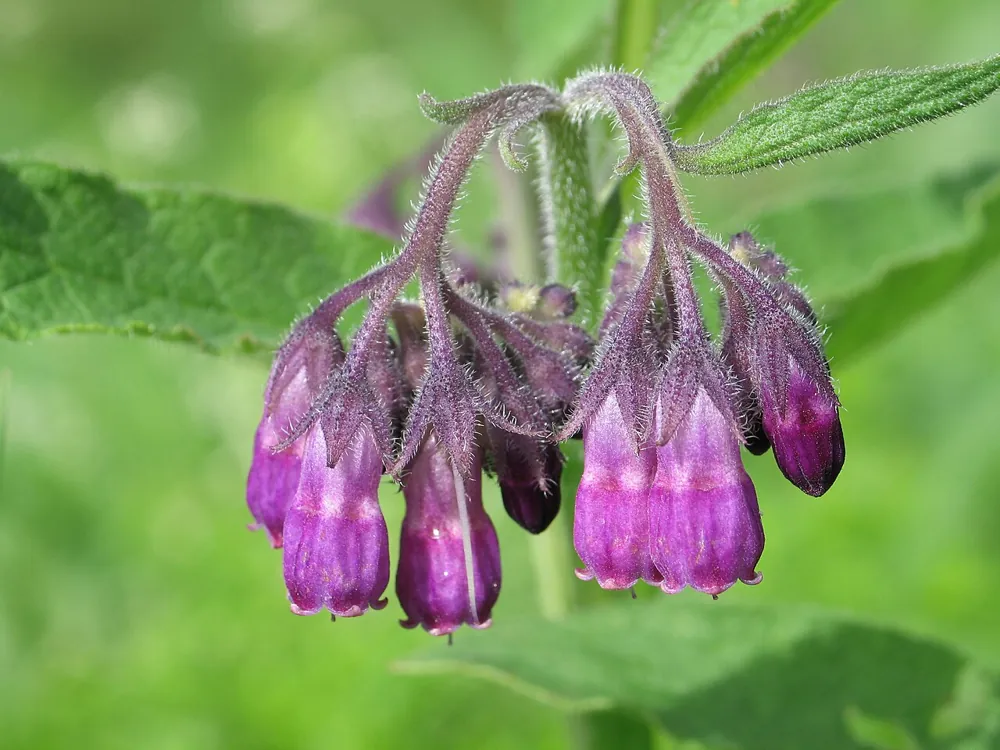
У нативних тканинах вільні основи трапляються рідко. Алкалоїди депонуються у вигляді солей органічних кислот (яблучної, лимонної, винної, щавлевої, бурштинової; специфічних — меконової в маку, хінної в хінному дереві, хелідонової в чистотілі), рідше неорганічних, і у формі N-оксидів — полярних, водорозчинних, нетоксичних для самої рослини транспортних та запасних форм (особливо піролізидинових алкалоїдів родин Asteraceae й Boraginaceae).
3.3Оптична активність
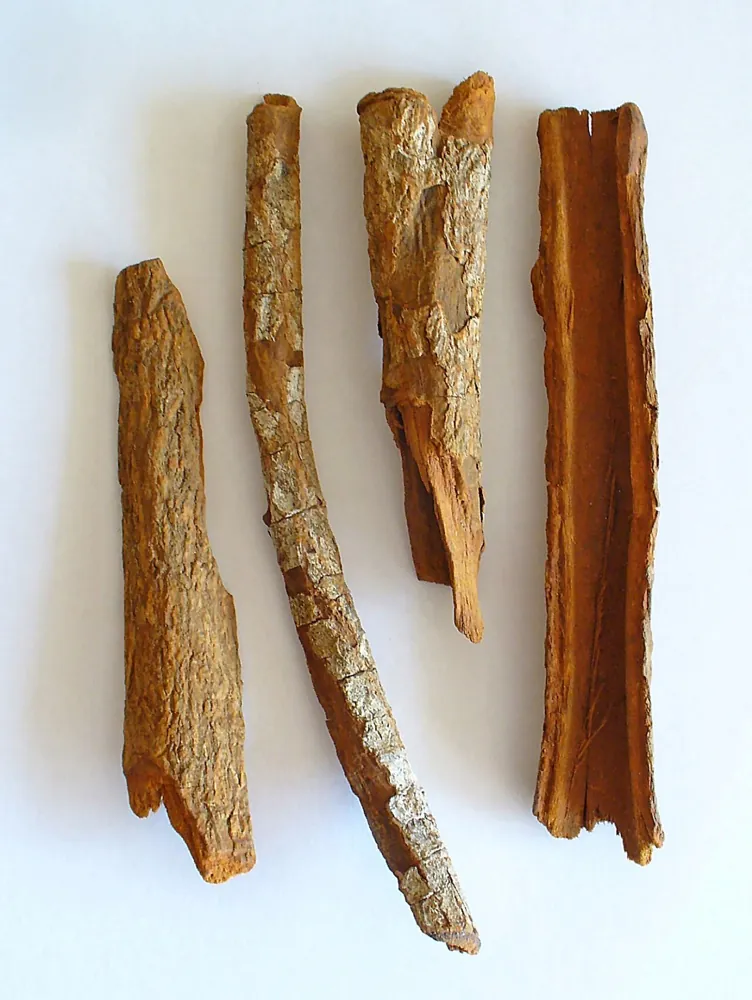
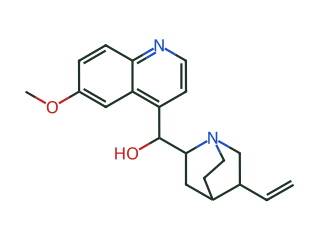
Біосинтез каталізують хіральні ферменти, тому майже всі природні алкалоїди оптично активні, причому в рослині переважають лівообертальні (−) ізомери, зазвичай значно активніші за правообертальні. Природний l-гіосціамін удвічі сильніше блокує периферичні М-холінорецептори, ніж рацемічний атропін (D,L-гіосціамін, що утворюється при лужному виділенні). Показова пара — діастереомери кори хінного дерева: лівообертальний хінін — протималярійний засіб, а правообертальний хінідин — антиаритмік класу ІА [3].
Хінін і хінідин мають ту саму плоску формулу, тому на кресленні вони однакові: різниця лише в просторовому розташуванні атомів біля двох стереоцентрів.
3.4Правило диференційної розчинності та екстракція
Вільні основи розчиняються в неполярних органічних розчинниках (хлороформ, дихлорметан, діетиловий етер, бензол, етилацетат) і практично не розчиняються у воді (винятки — кофеїн, ефедрин, кодеїн, нікотин, коніїн). Солі й N-оксиди, навпаки, розчинні у воді та спиртах, але не в неполярних розчинниках. На цьому ґрунтуються обидва класичні методи виділення: екстракція основ органічним розчинником після підлужування сировини або екстракція солей підкисленою водою чи спиртом із наступним очищенням зміною pH [3].
Перемикайте pH у моделі нижче й дивіться, куди «йде» алкалоїд — у воду (катіон) чи в органічну фазу (вільна основа).
Оберіть алкалоїд, змініть pH — модель за рівнянням Гендерсона — Гассельбаха покаже розподіл між формами та між фазами.
04Поширення, вміст і різноманіття
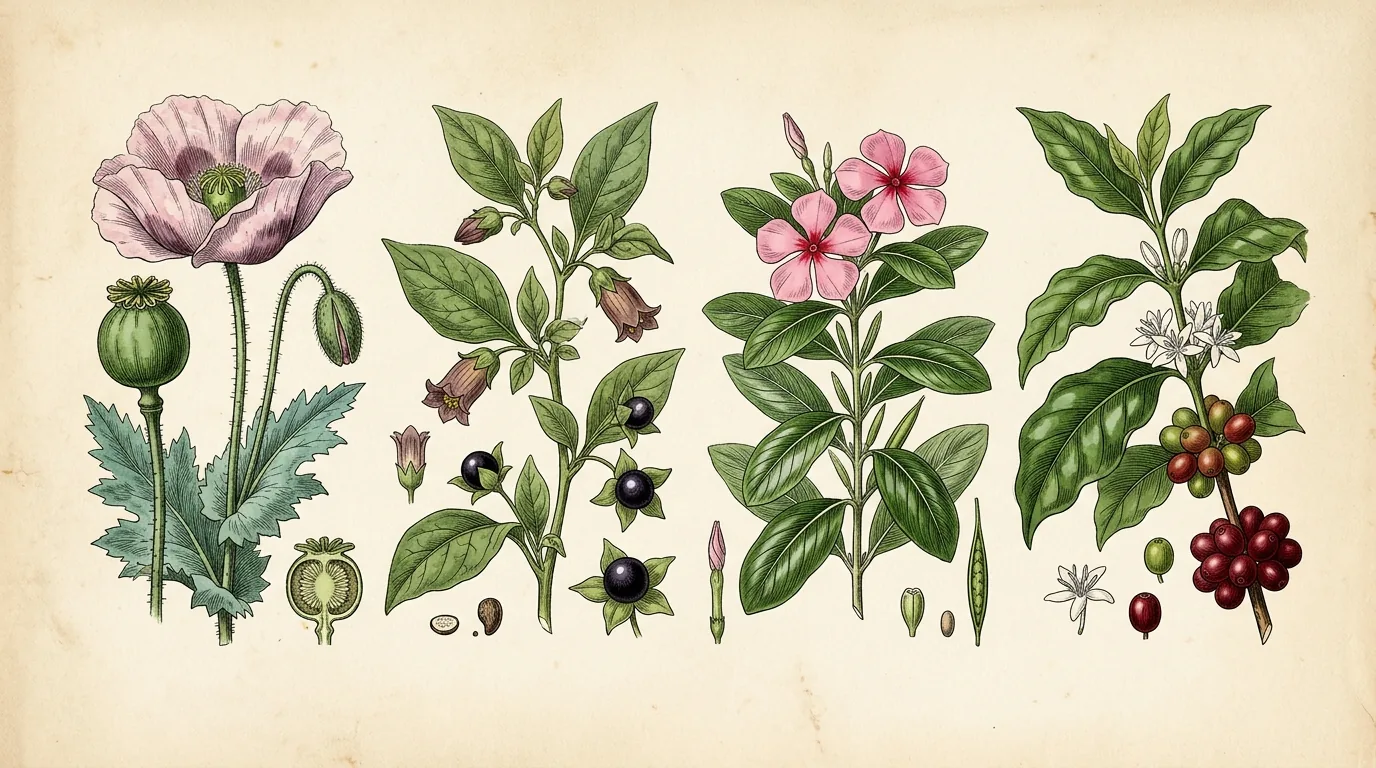
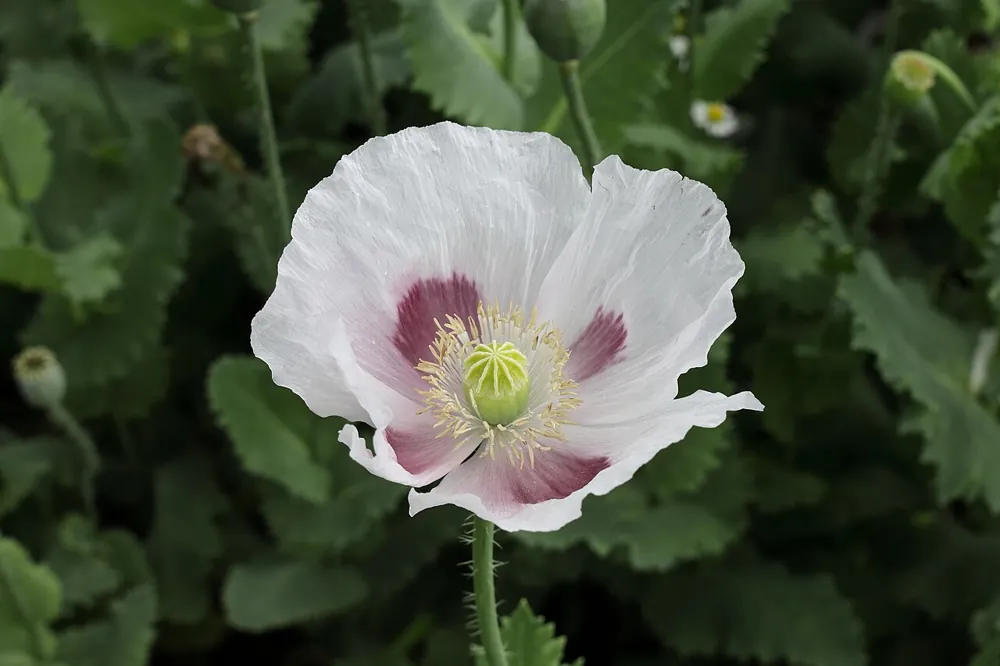
Алкалоїди синтезує приблизно 10–25 % видів вищих судинних рослин, і переважно це покритонасінні дводольні. У мохоподібних, папоротеподібних і голонасінних їх мало (винятки — плауни Lycopodium, хвощі Equisetum, роди Ephedra та Taxus). Найбагатші на алкалоїди родини зібрано нижче [3, 4].
Оберіть родину — побачите її класи алкалоїдів, типових продуцентів і структури.
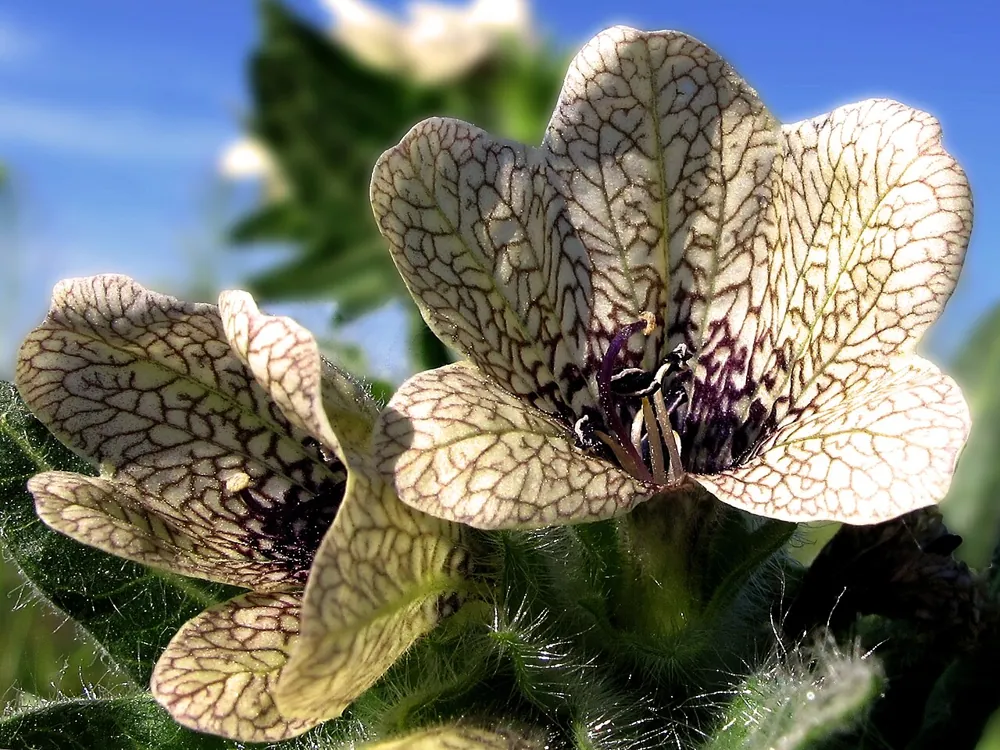
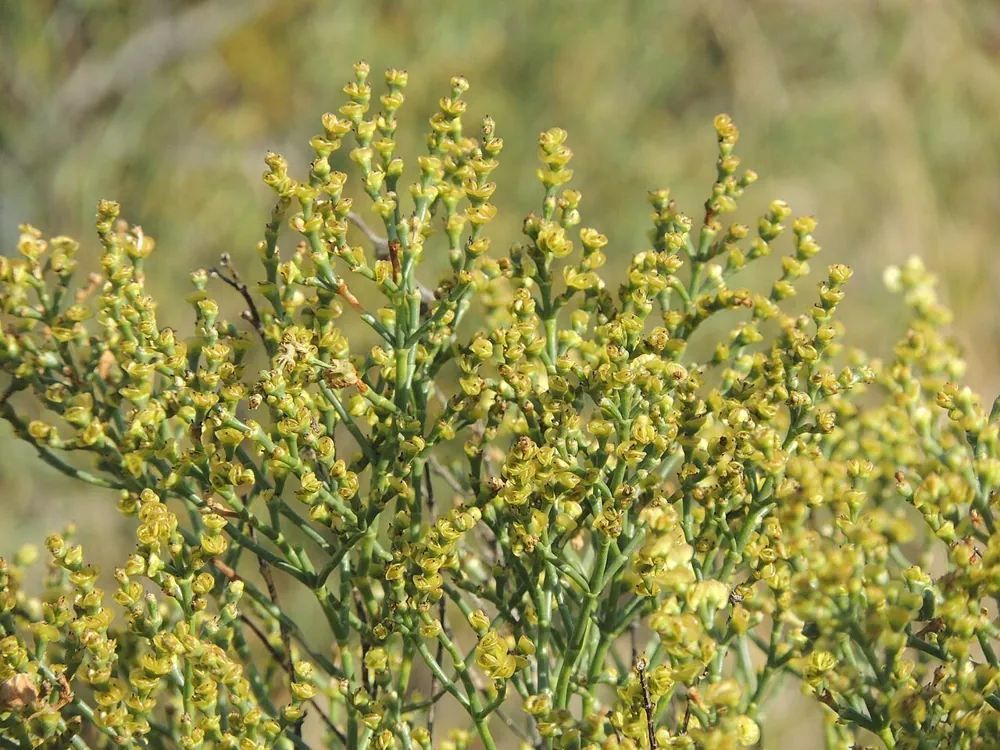
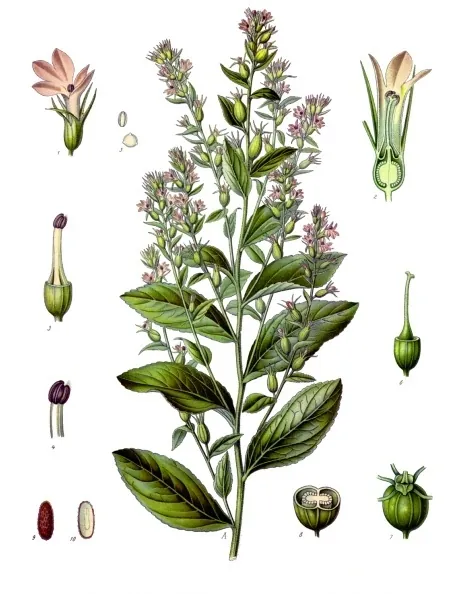
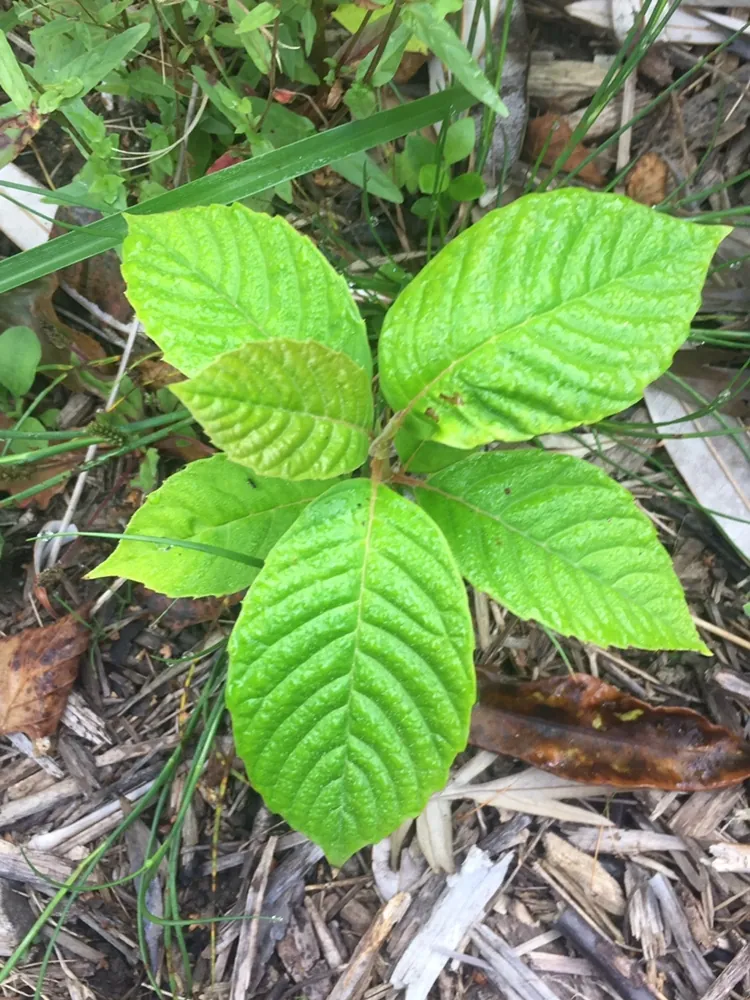
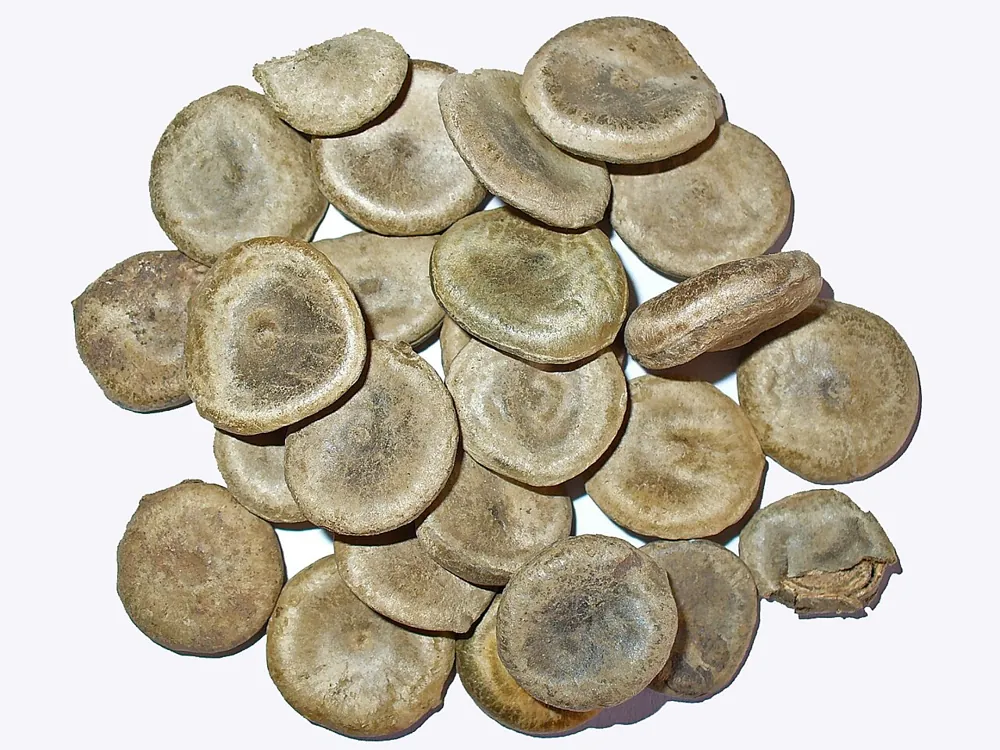
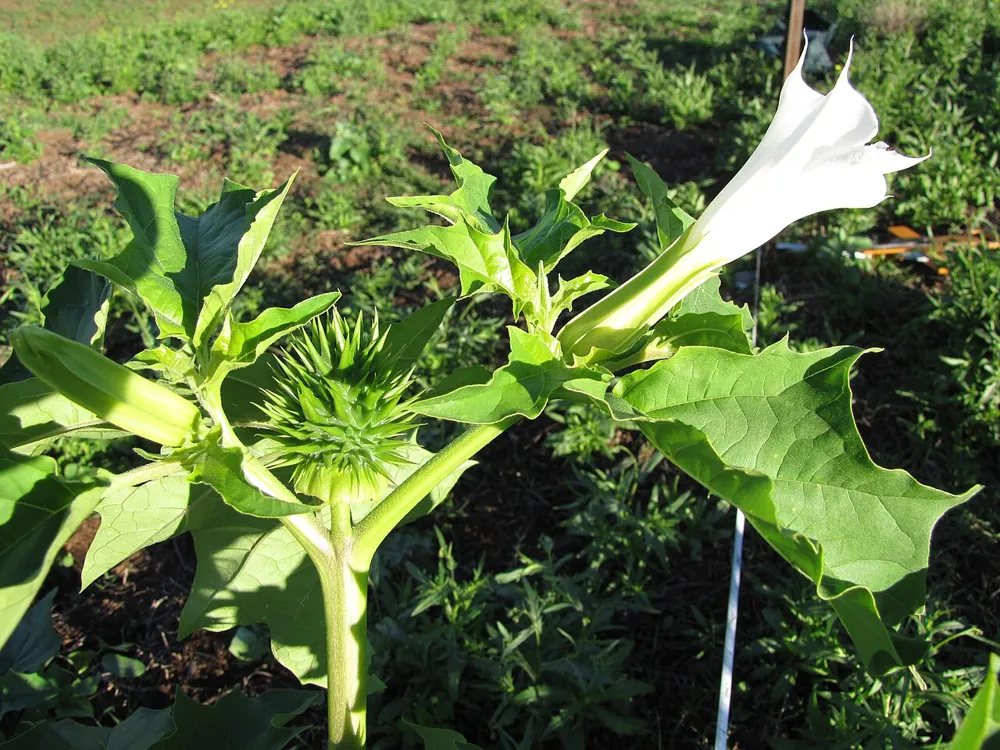
Фотогалерея: рослини з алкалоїдами
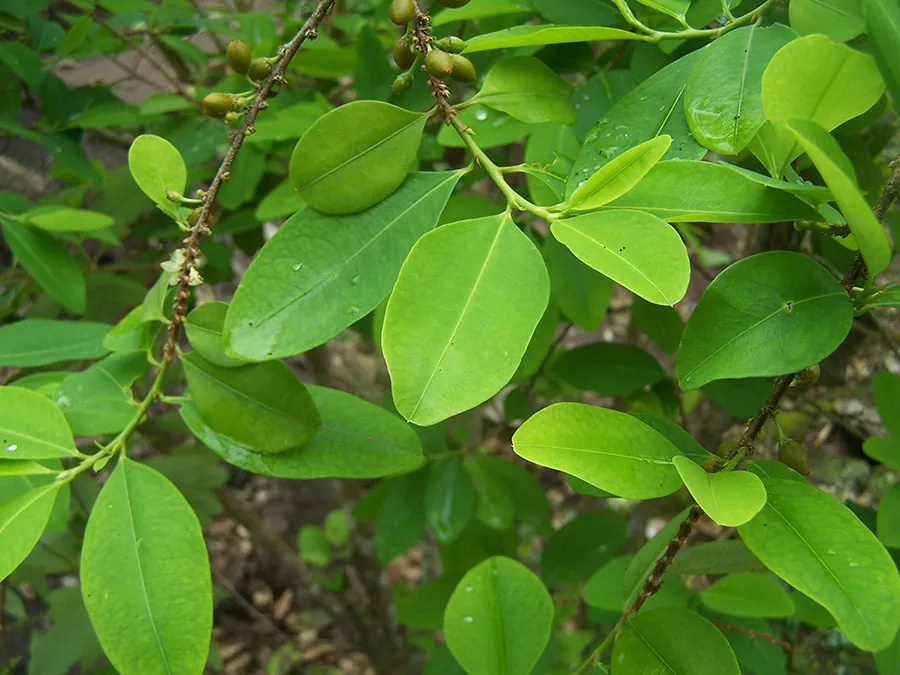
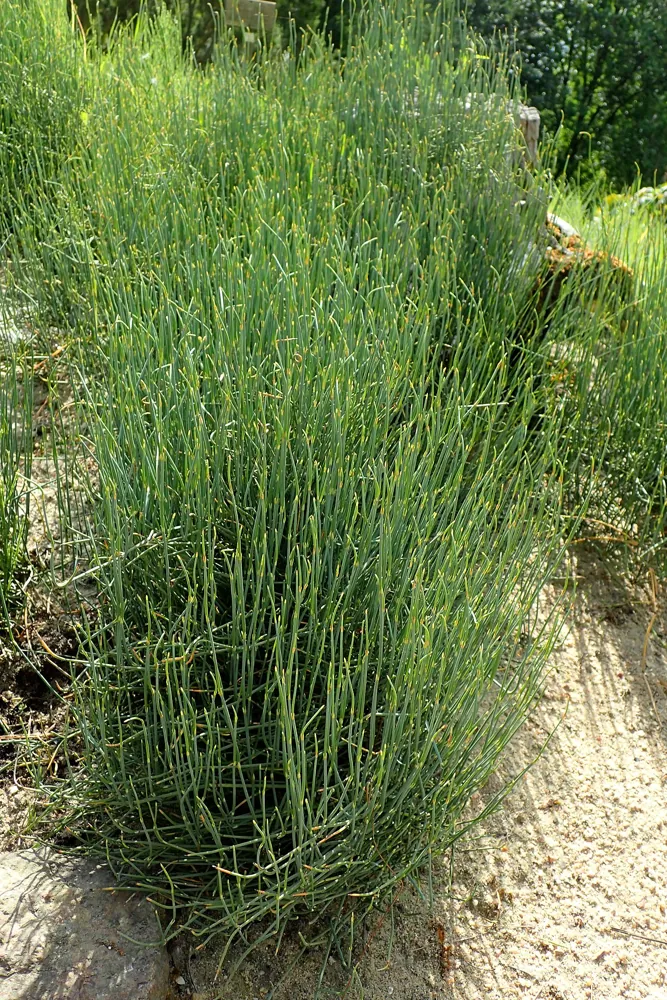
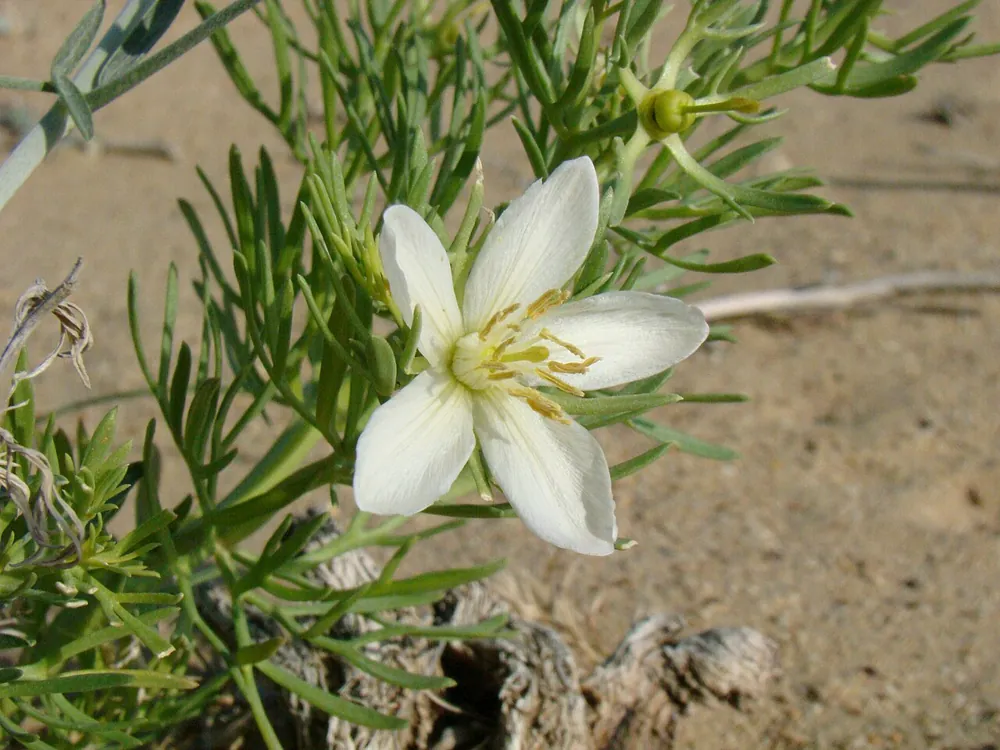
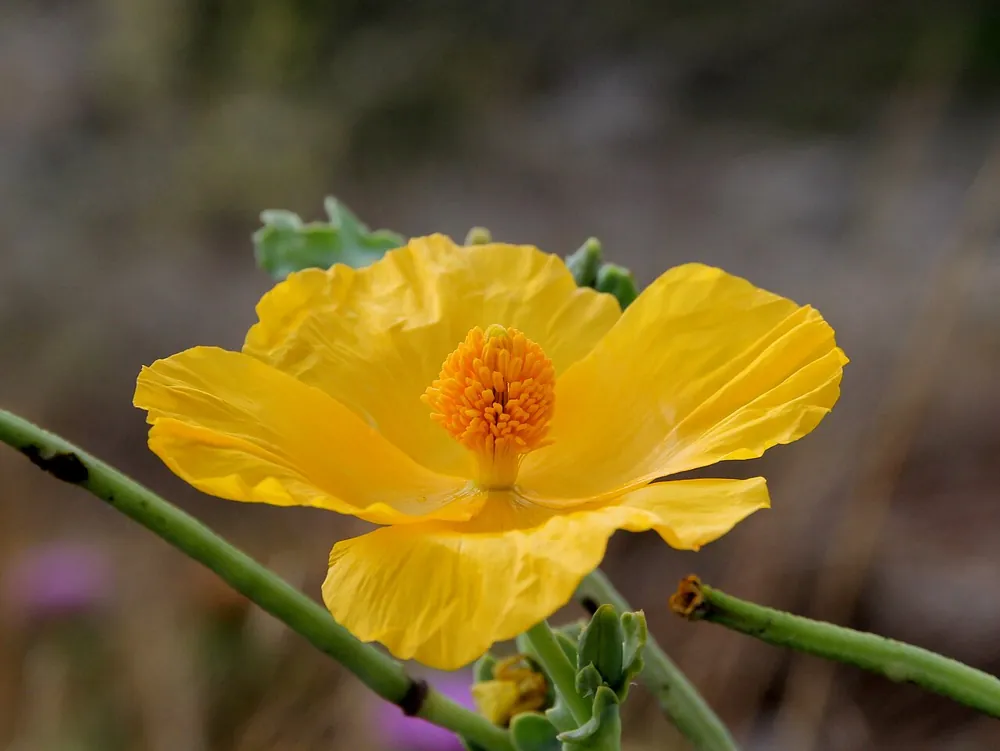
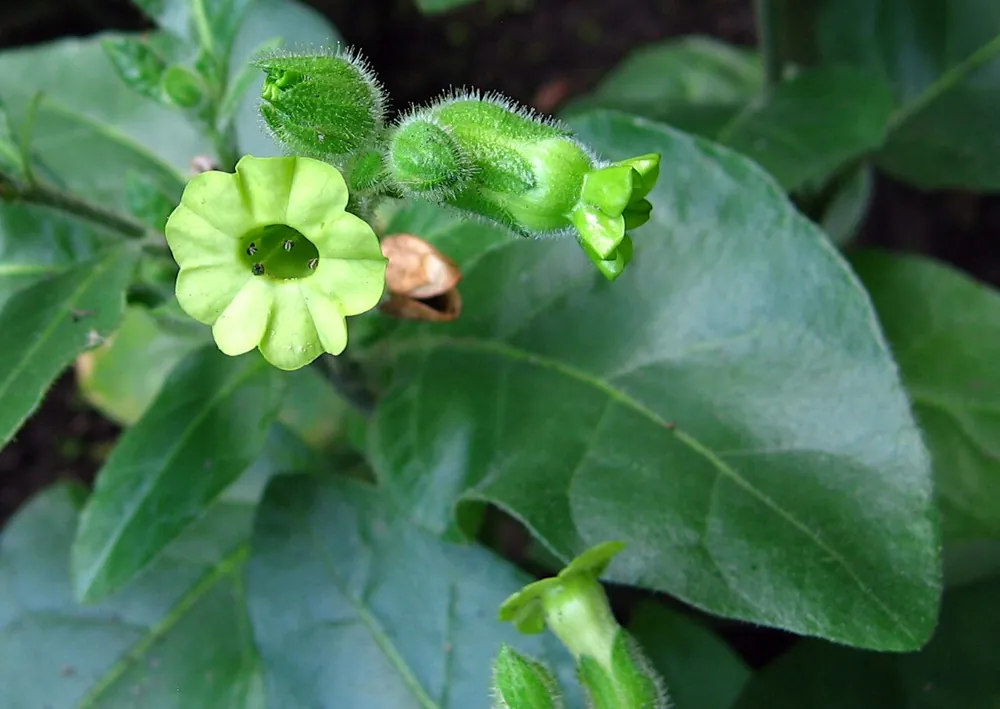
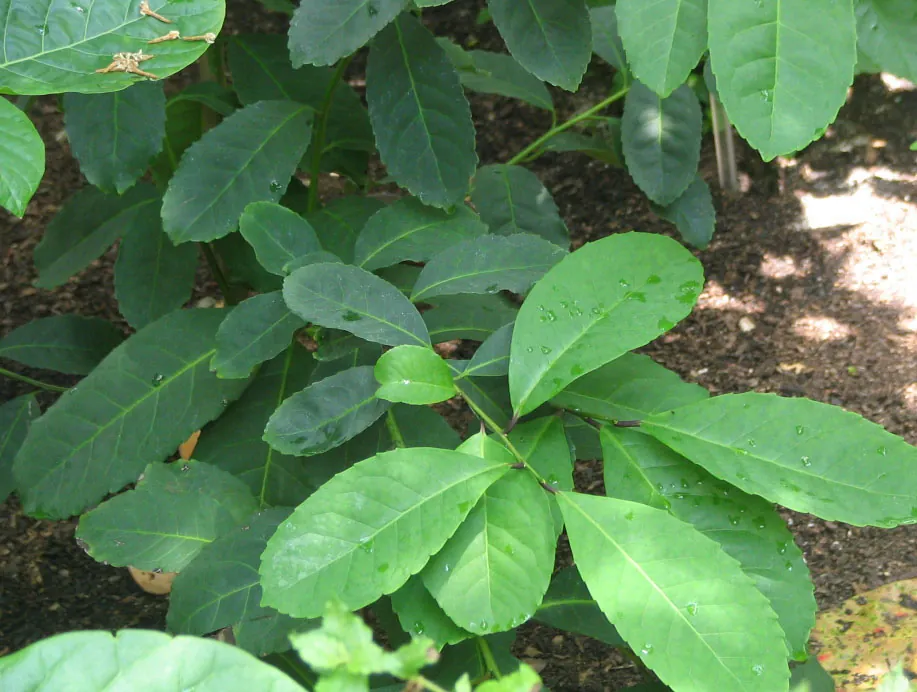
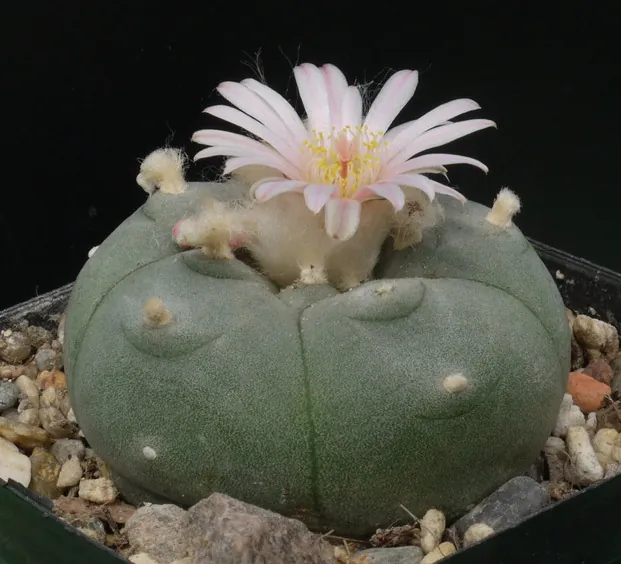
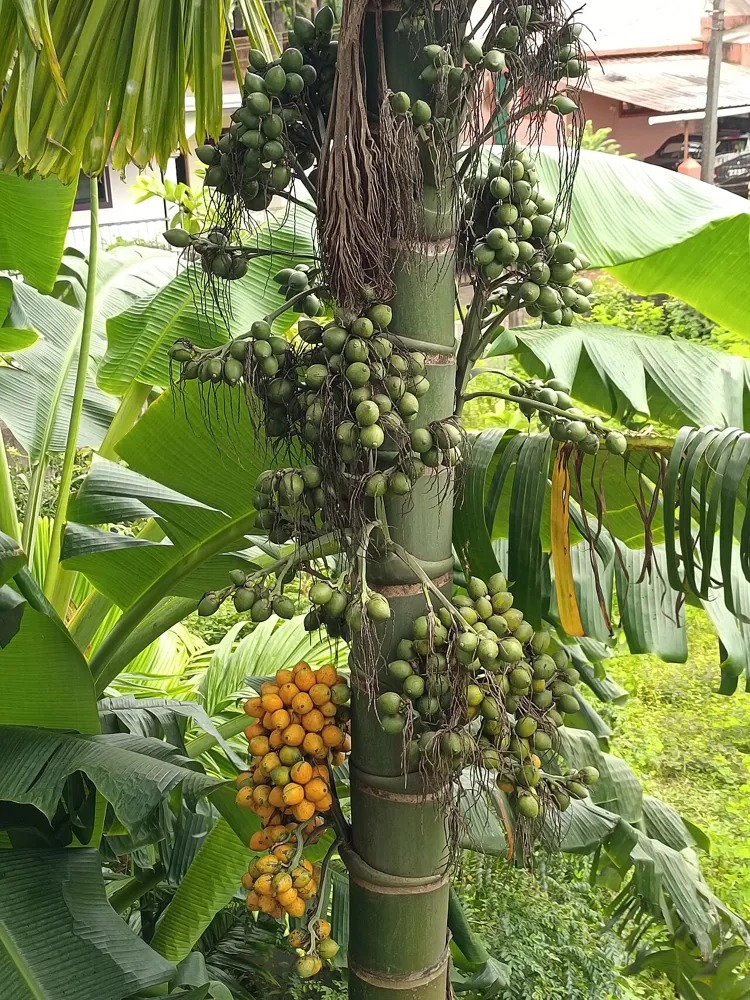
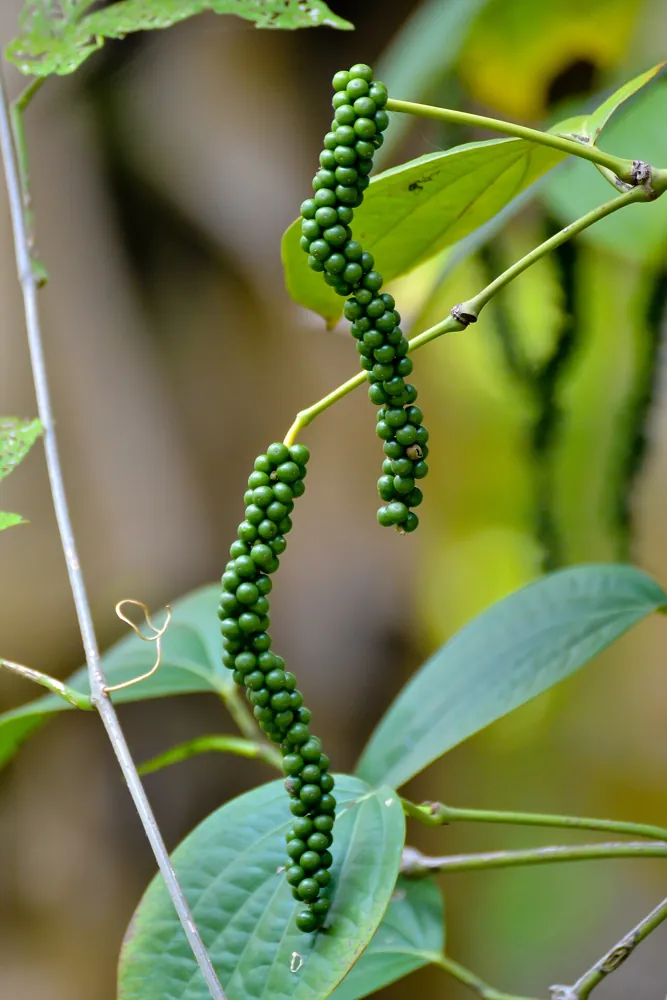
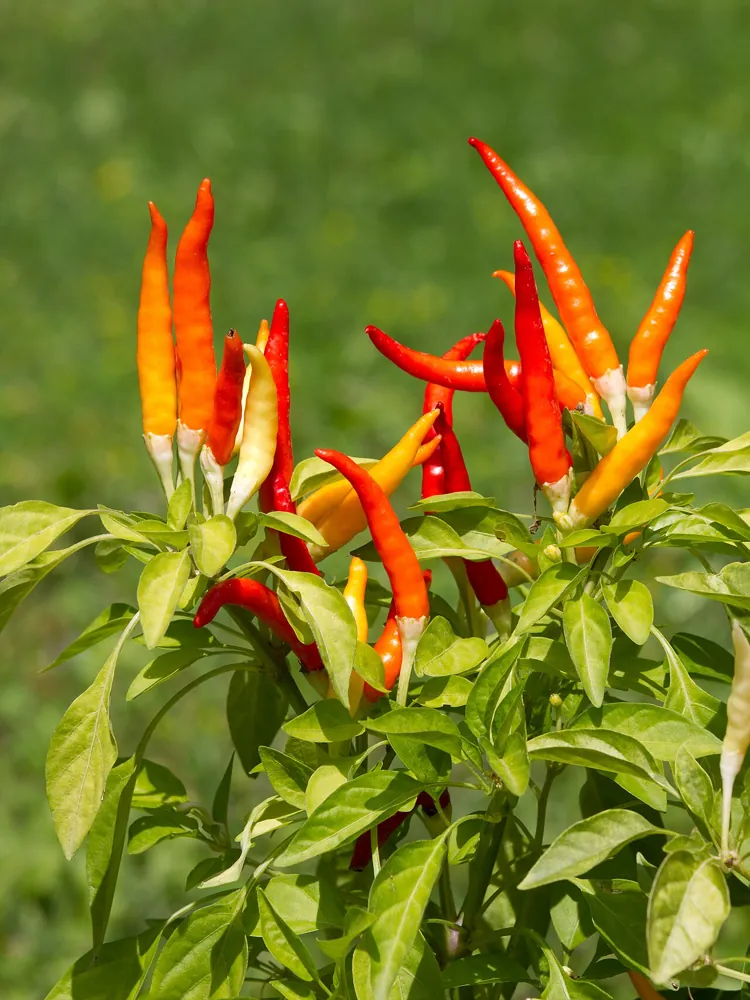
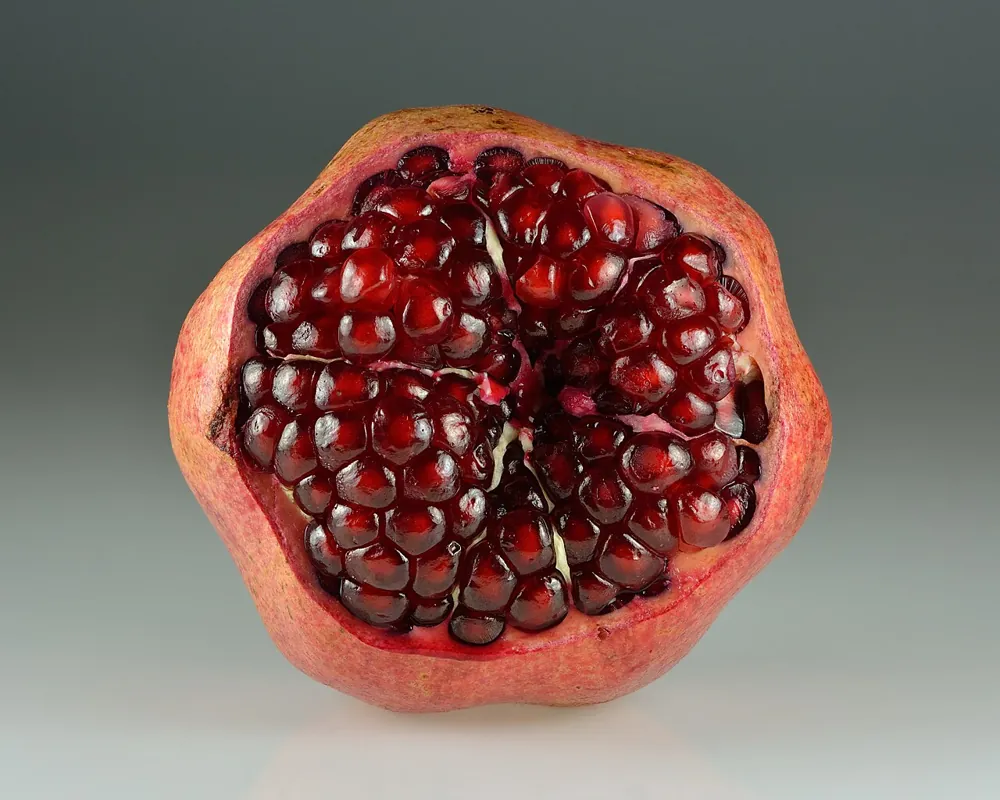
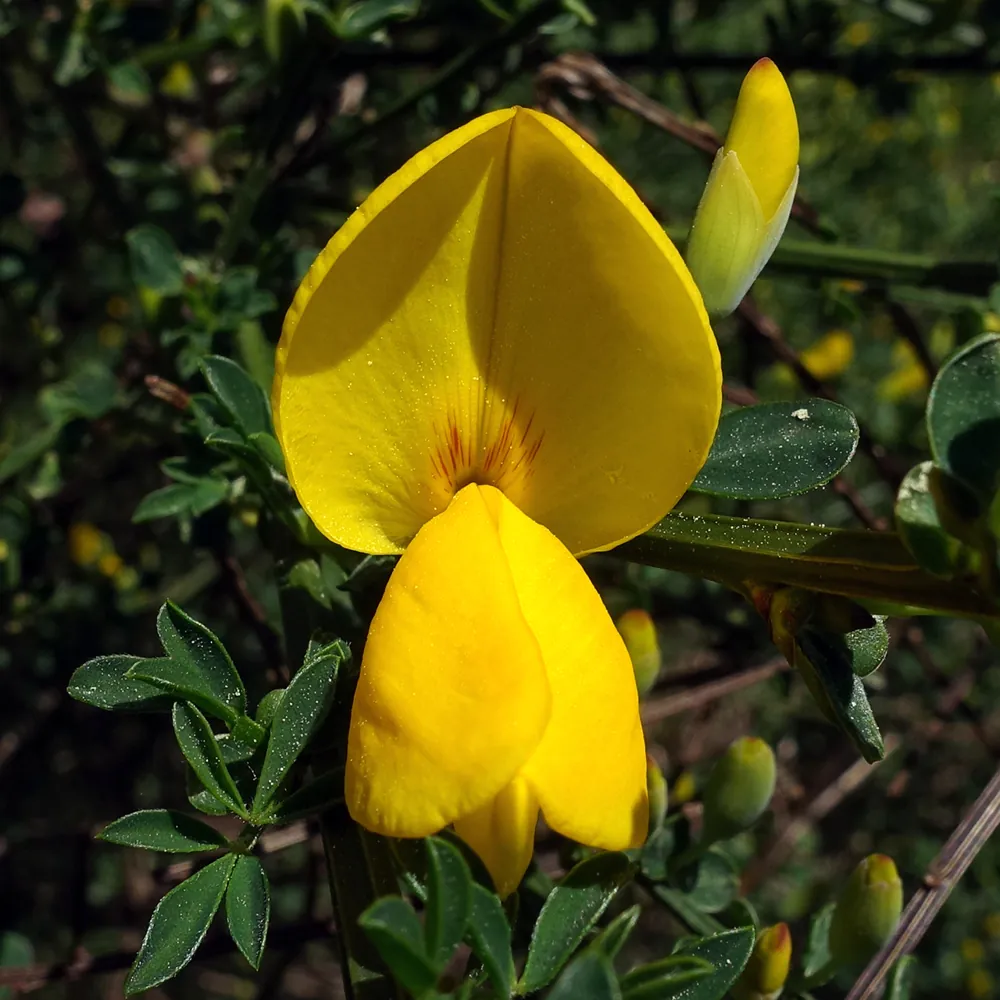
4.1Скільки алкалоїдів у рослині
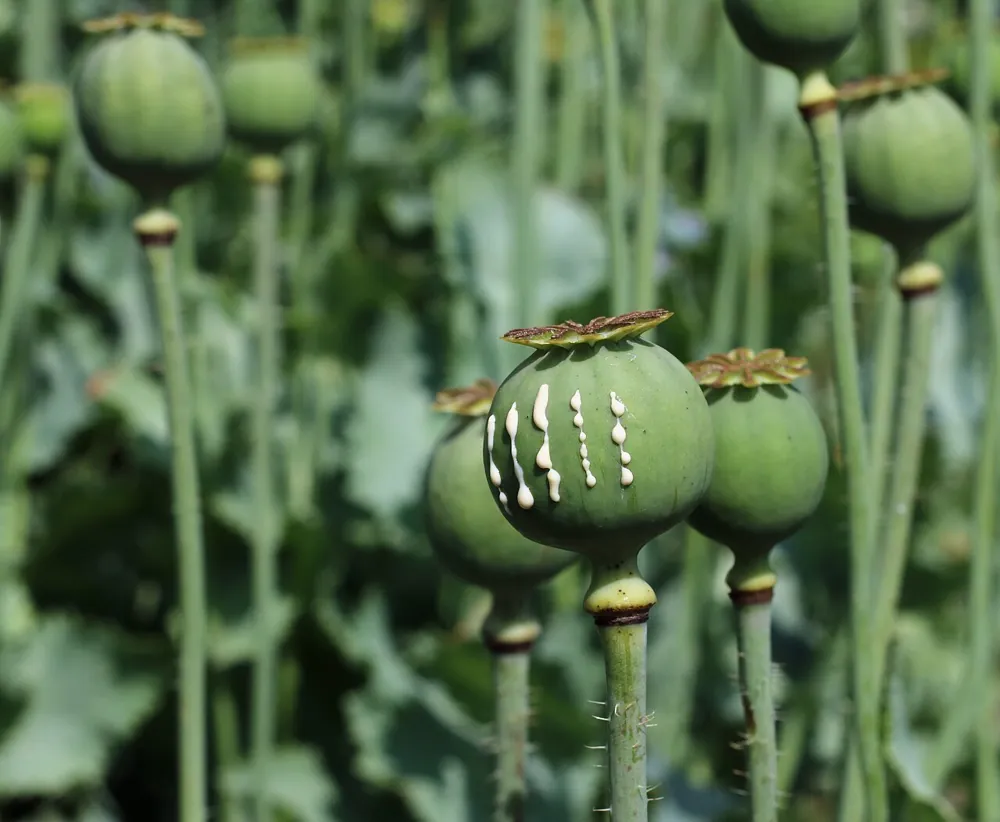
Вміст алкалоїдів у сухій масі зазвичай становить від сотих часток відсотка до 1–3 % (понад 1 % — це вже «високоалкалоїдоносні» рослини). Рекордсмени — кора культурного хінного дерева Cinchona ledgeriana та листки махорки Nicotiana rustica, де концентрація сягає кількох відсотків і більше; у латексі маку морфінових алкалоїдів, за оцінками монографії, до ≈ 22 %.
Одна рослина рідко містить єдиний алкалоїд (як рицинін у рицині). Зазвичай це комплекс із 15–20 і більше споріднених сполук: у Papaver somniferum їх понад 40, у Catharanthus roseus — понад 130.
Орієнтовні дані з монографії: ліворуч — кількість відомих структур за класами, праворуч — максимальний вміст у сухій сировині.
05Систематика й класифікація
Єдиної універсальної класифікації алкалоїдів немає, бо їхнє структурне різноманіття надто велике. У фітохімії й фармакогнозії поєднують біогенетичний принцип (з якого попередника й яким способом включено азот) та хімічний принцип (яке гетероциклічне ядро лежить в основі молекули) [1, 3].
5.1Біогенетична класифікація (за Хегнауером і Дьюїком)
Загальновизнану систему запропонував швейцарський ботанік Роберт Хегнауер (1963), а розвинув її Пол Дьюїк. Вона враховує походження вуглецево-азотного скелета та положення азоту — всередині гетероциклу чи поза ним [5, 4]. Неізопреноїдні алкалоїди поділяють на три надгрупи:
- Справжні алкалоїди (true alkaloids) — найчисленніша, класична група. Синтезуються з протеїногенних і непротеїногенних амінокислот (L-орнітину, L-лізину, L-тирозину, L-фенілаланіну, L-триптофану, L-гістидину, а також антранілової й аспарагінової кислот), а азот амінокислоти вбудовується в гетероцикл. Це піролідинові, тропанові, піролізидинові, піперидинові, хінолізидинові, індолізидинові, піридинові, ізохінолінові, індольні, хінолінові, хіназолінові, акридинові та імідазольні алкалоїди.
- Протоалкалоїди (біогенні аміни) — теж із амінокислот (передусім ароматичних), але азот лишається поза циклом, в аліфатичному ланцюзі: похідні β-фенілетиламіну (мескалін, ефедрин, катинон, горденін), бензиламіну (капсаїцин), триптаміну (грамін) і трополонові колхіцин та колхамін.
- Псевдоалкалоїди — азотовмісні сполуки, вуглецевий скелет яких побудований не з амінокислот, а азот приєднується пізніше (за реакціями трансамінування) або походить з пуринових нуклеотидів. Серед неізопреноїдних це пуринові (кофеїн, теобромін, теофілін — із ксантозину й інозинмонофосфату) та полікетидні піперидинові (коніїн, N-метилконіїн, γ-коніцеїн болиголова; восьмивуглецевий скелет будується з чотирьох малоніл-КоА).
У деяких системах виділяють ще поліамінні (пауцин, лунарин, вербасценін — із путресцину, спермідину, сперміну) та циклопептидні алкалоїди з 13–15-членними циклами (зизифін А, франгуланін, мукронін А у Rhamnaceae); за іншого підходу пурини відносять не до псевдо-, а до окремої четвертої групи [1]. Коніїн за структурою (піперидин) часто зараховують до справжніх алкалоїдів, хоча за біогенезом він — полікетидний псевдоалкалоїд.
5.2Хімічна класифікація: ядро + попередник
Для структурної хімії й фармакологічного скринінгу алкалоїди групують за природою базового азотового гетероциклу (скафолду). Цей підхід узгоджується з номенклатурою ІЮПАК. На карті нижче ліворуч — амінокислотні й нуклеотидні попередники, праворуч — 15 класів ядер. Натискайте на клас: з'являться ядро, ключові проміжні сполуки, представники зі структурами та рослини-продуценти.
Оберіть попередника або клас — карта підсвітить шлях.
Зведена таблиця: попередник → клас → проміжні сполуки → представники → рослини
| Біогенетичний прекурсор | Клас (ядро) | Ключові проміжні сполуки | Типові представники | Рослини-продуценти |
|---|---|---|---|---|
| L-Орнітин / L-аргінін | Піролідинові Піролідин (тетрагідропірол, C₄H₉N) | Путресцин → N-метилпутресцин → катіон N-метил-Δ¹-піролінію | Гігрин, кускогігрин, стахідрин | Erythroxylum coca, Convolvulus, Stachys, Atropa belladonna |
| L-Орнітин / L-аргінін (+ L-фенілаланін для естерної частини) | Тропанові 8-Метил-8-азабіцикло[3.2.1]октан (тропан) | Катіон N-метилпіролінію → тропінон → тропін + феніллактат → літорин | Атропін (гіосціамін), скополамін (гіосцин), кокаїн, калістегіни | Atropa belladonna, Hyoscyamus niger, Datura stramonium, Duboisia, Erythroxylum coca |
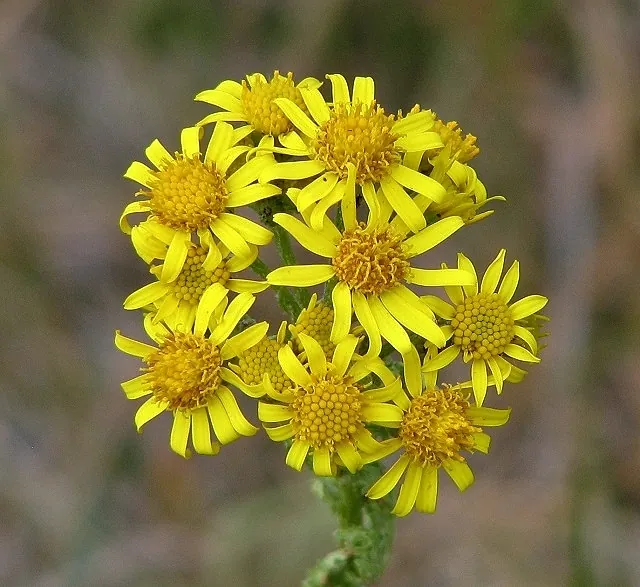
| 2 × L-орнітин / L-аргінін (через путресцин і спермідин); нецинові кислоти — з L-Ile, L-Val | Піролізидинові Піролізидин; нецинові основи (1-гідроксиметилпіролізидин) | Путресцин → гомоспермідин → ретронецин / геліотридин | Сенеціонін, платифілін, ретронецин, геліотрин, ретрорсин, монокроталін | Senecio, Jacobaea vulgaris, Petasites (Asteraceae); Symphytum, Heliotropium (Boraginaceae); Crotalaria (Fabaceae) |
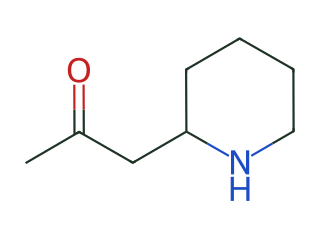
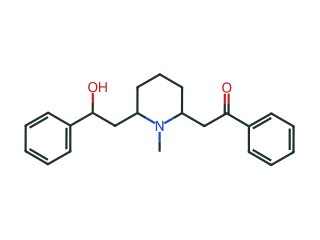
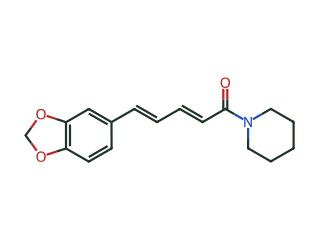
| L-Лізин (через кадаверин) + фенілпропаноїд / ацетат | Піперидинові Піперидин (гексагідропіридин, C₅H₁₁N) | Кадаверин → Δ¹-піперидеїн | Піперин, лобелін, пелетьєрин, седамін, анаферин | Piper nigrum, P. longum; Lobelia inflata; Punica granatum; Sedum acre |
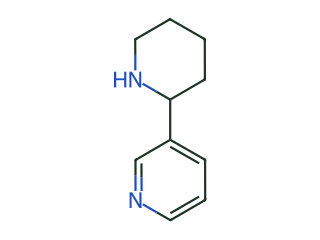
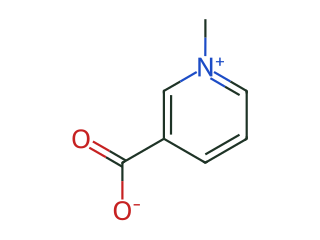
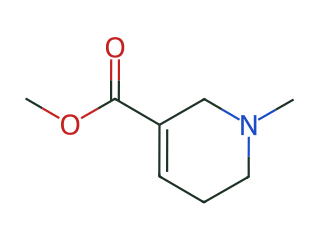
| Нікотинова кислота (з L-аспартату й гліцеральдегід-3-фосфату) + орнітин / лізин | Піридинові Піридин (C₅H₅N), часто з піролідином чи піперидином | Хінолінова кислота → нікотинова кислота → 1,2-дигідропіридин | Нікотин, норнікотин, анабазин, анатабін, тригонелін, рицинін, ареколін | Nicotiana tabacum, N. rustica; Anabasis aphylla; Trigonella foenum-graecum; Ricinus communis; Areca catechu |
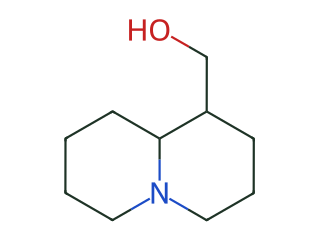
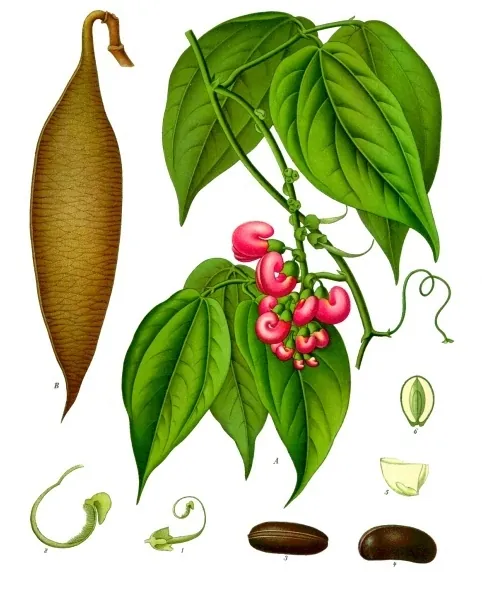
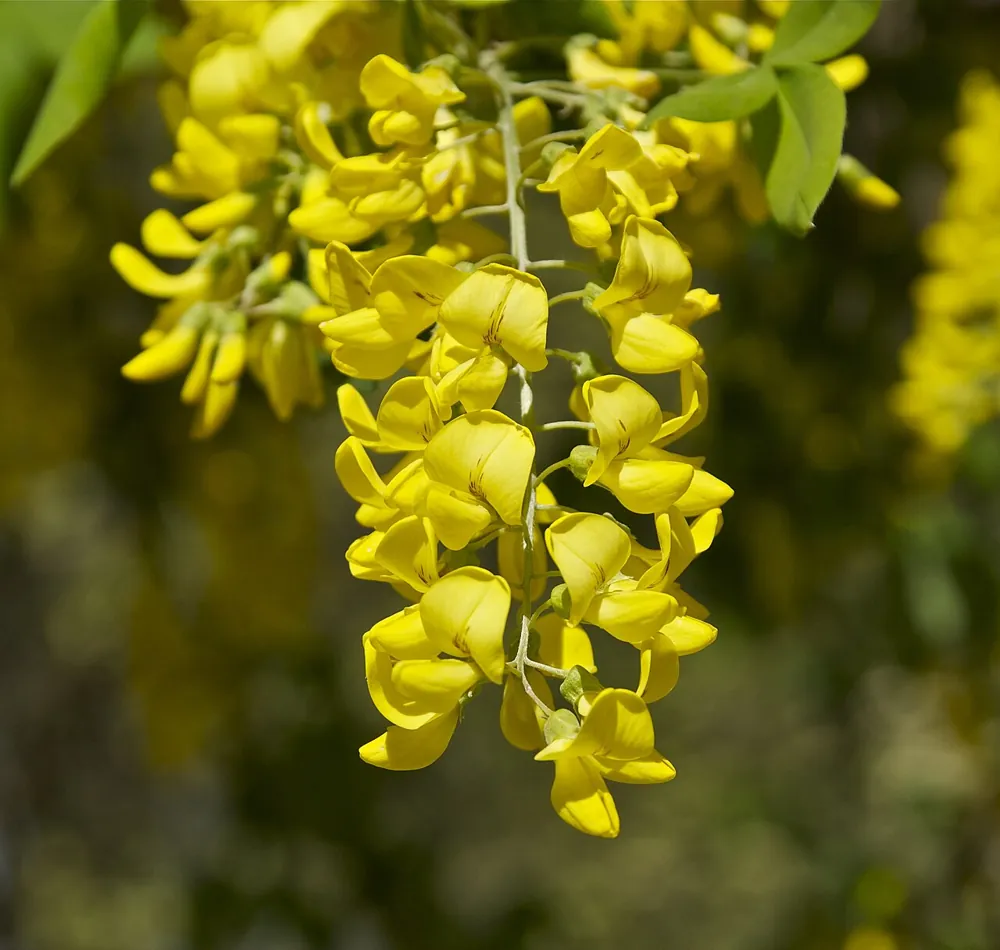
| 2–3 × L-лізин (через Δ¹-піперидеїн) | Хінолізидинові Октагідро-2H-хінолізин (бі-, три- й тетрациклічні) | Кадаверин → Δ¹-піперидеїн → димеризація / тримеризація | Лупінін, спартеїн (пахікарпін), лупанін, цитизин, матрин | Lupinus, Laburnum, Cytisus, Thermopsis, Sophora flavescens (Fabaceae) |
| L-Лізин (через L-піпеколінову кислоту) | Індолізидинові Октагідроіндолізин (конденсовані 6- та 5-членне кільця) | α-Аміноадипіновий напівальдегід → піпеколінова кислота → 1-індолізидинон | Свайнсонін, кастаноспермін | Astragalus, Oxytropis, Swainsona, Castanospermum australe (Fabaceae) |
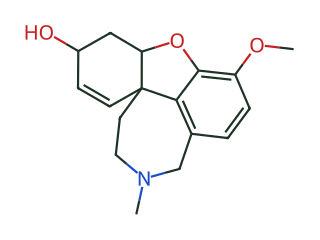
| 2 × L-тирозин (дофамін + 4-гідроксифенілацетальдегід) | Ізохінолінові та бензилізохінолінові (БІА) 1-Бензил-1,2,3,4-тетрагідроізохінолін; морфінан, протоберберин, апорфін, бензофенантридин | Дофамін + 4-HPAA → (S)-норкоклаурин → (S)-ретикулін | Морфін, кодеїн, тебаїн, папаверин, носкапін, берберин, пальматин, сангвінарин, глауцин, тубокурарин, еметин, галантамін | Papaver somniferum, Chelidonium majus, Glaucium flavum (Papaveraceae); Berberis (Berberidaceae); Nelumbo, Stephania, Chondrodendron; Galanthus (Amaryllidaceae) |
| L-Триптофан (через триптамін) | Індольні та β-карболінові Індол (бензо[b]пірол); 9H-піридо[3,4-b]індол | Триптамін + секологанін → стриктозидин → катарантин, таберсонін, віндолін | Вінбластин, вінкристин, резерпін, аймалін, йохімбін, вінкамін, стрихнін, бруцин, фізостигмін, гармін, гармалін | Catharanthus roseus, Rauvolfia serpentina, Vinca minor, Strychnos nux-vomica, Physostigma venenosum, Peganum harmala |
| L-Триптофан (через стриктозидин: індол рециклізується в хінолін) | Хінолінові Хінолін (1-азанафталін, C₉H₇N) | Стриктозидин → коринантеаль → цинхонінон | Хінін, хінідин, цинхонін, цинхонідин, камптотецин | Cinchona (Rubiaceae); Camptotheca acuminata |
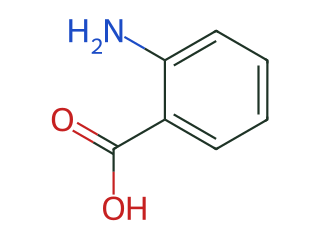
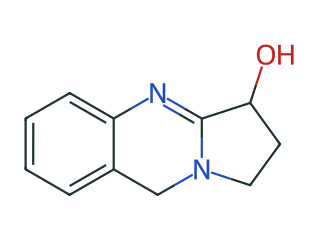
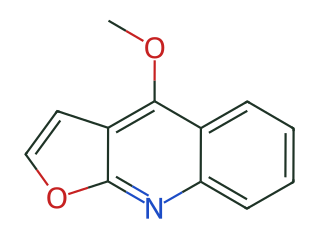
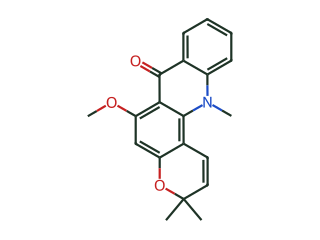
| Антранілова кислота (2-амінобензойна) | Хіназолінові, фурохінолінові та акридинові Хіназолін, фуро[2,3-b]хінолін, акридин | Антранілоїл-КоА + малоніл-КоА → 2,4-дигідроксихінолін; N-метилантранілоїл-КоА + 3 малоніл-КоА → акридон | Вазицин (пеганін), диктамнін, скіміанін, акроніцин, рутакридон, фебрифугін | Adhatoda vasica, Peganum harmala; Dictamnus albus, Ruta graveolens, Skimmia (Rutaceae); Dichroa febrifuga |
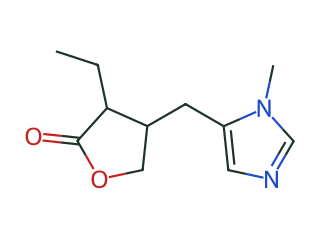
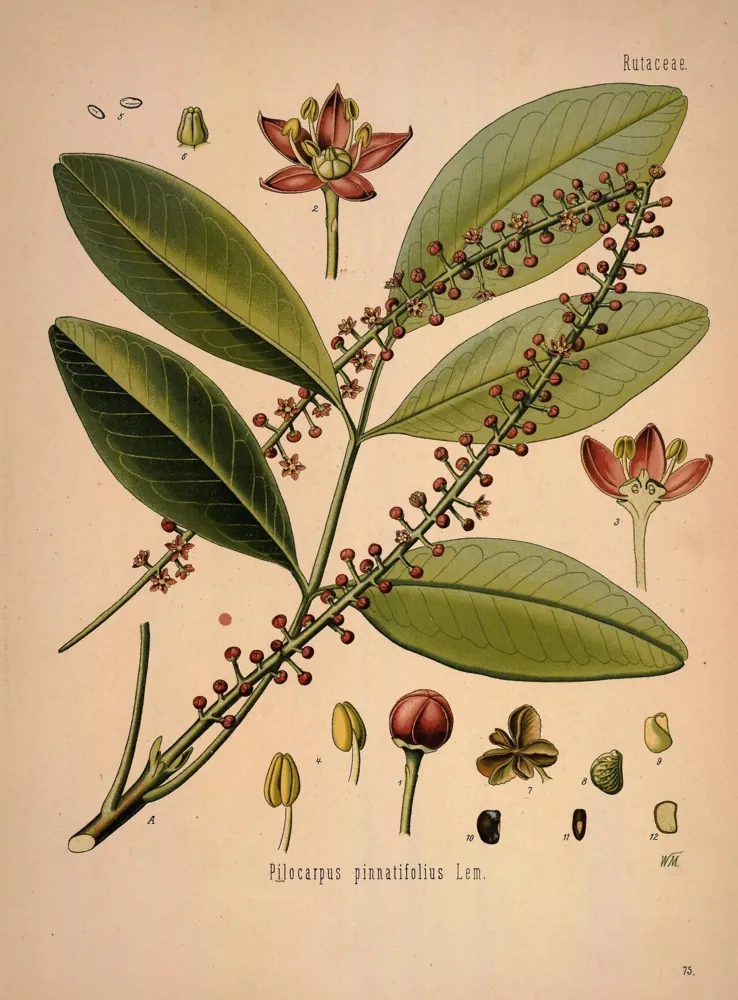
| L-Гістидин | Імідазольні 1H-Імідазол (1,3-діазол) | L-Гістидин → декарбоксилювання, метилювання, утворення лактонного кільця | Пілокарпін, ізопілокарпін, пілозин | Pilocarpus jaborandi, P. microphyllus (Rutaceae) |
| L-Фенілаланін / L-тирозин / L-триптофан | Протоалкалоїди (екзоциклічні аміни) Фенілетиламін, бензиламін або амінотрополон: азот поза циклом | Тирамін, дофамін, 1-фенілпропан-1,2-діон, (S)-аутумналін | Ефедрин, псевдоефедрин, катинон, мескалін, горденін, капсаїцин, грамін, колхіцин, колхамін | Ephedra sinica, Catha edulis, Lophophora williamsii, Hordeum vulgare, Capsicum annuum, Colchicum autumnale, Gloriosa superba |
| Ксантозин (пуринові нуклеотиди) або малоніл-КоА + L-аланін (коніїн) | Псевдоалкалоїди (пуринові та полікетидні) Пурин (ксантин) або 2-пропілпіперидин | Ксантозин → 7-метилксантозин → 7-метилксантин → теобромін → кофеїн | Кофеїн, теобромін, теофілін; коніїн, γ-коніцеїн | Coffea arabica, Camellia sinensis, Theobroma cacao, Paullinia cupana, Ilex paraguariensis; Conium maculatum |
| Орнітин / путресцин, спермідин, спермін; олігопептиди | Поліамінні та циклопептидні Аліфатичні поліаміни; макроциклічні пептиди з 13–15-членним циклом | Путресцин → спермідин → спермін; циклодимеризація пептидів | Пауцин, лунарин, вербасценін, зизифін А, франгуланін, мукронін А | Lunaria, Verbascum, Ziziphus, Rhamnus frangula (Rhamnaceae) |
06Хімічна логіка біосинтезу
На відміну від терпеноїдів чи жирних кислот, що будуються з єдиного універсального блоку (C₅ або C₂), біосинтез алкалоїдів починається з різних гілок первинного обміну, які постачають амінокислотні й нуклеотидні попередники [1, 6]:
- Шикіматний шлях (фосфоенолпіруват + еритрозо-4-фосфат → шикімат → хоризмат) у пластидах: сім реакцій дають хоризмат, який через хоризматмутазу й префенат веде до L-фенілаланіну та L-тирозину, а через антранілатсинтазу — до антранілової кислоти й L-триптофану. Звідси походять ізохінолінові, індольні, хінолінові, хіназолінові, акридинові алкалоїди та більшість протоалкалоїдів.
- Цикл Кребса, орнітиновий та аспартатний шляхи: α-кетоглутарат → L-глутамат → L-орнітин і L-аргінін (піролідинові, тропанові, піролізидинові, поліамінні алкалоїди); оксалоацетат → L-аспартат, звідки відгалужуються біосинтез нікотинової кислоти (піридинові алкалоїди) і діамінопімелатний шлях до L-лізину (піперидинові, хінолізидинові, індолізидинові).
- Метаболізм пуринів: з гліцину, глутаміну, аспартату, CO₂ й формілтетрагідрофолату через інозинмонофосфат (ІМФ), ГМФ і АМФ утворюється нуклеозид ксантозин — попередник кофеїну.
Попри різні вихідні амінокислоти, ранні етапи побудови гетероциклічного каркаса (scaffold-forming steps) підпорядковуються єдиній хімічній логіці й спираються на невеликий консервативний набір реакцій. Нижче — шість ключових із прикладами [6, 7].
1Декарбоксилювання
PLP-залежні декарбоксилази (ODC, ADC, LDC, TYDC, TDC, HDC) відщеплюють α-COOH від амінокислоти у вигляді CO₂ й дають первинний біогенний амін або діамін — путресцин, кадаверин, тирамін, дофамін, триптамін, гістамін.
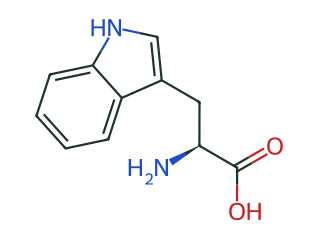 L-ТриптофанTDC · PLP→−CO₂
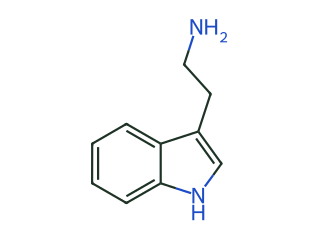 Триптамін
2Окисне дезамінування
Мідь-вмісні амінооксидази (CuAO) перетворюють первинну аміногрупу діаміну на альдегід з виділенням NH₃ та H₂O₂. Альдегідна група миттєво реагує з другою аміногрупою тієї ж молекули: вода відщеплюється, замикається циклічна основа Шиффа (імінієвий катіон).
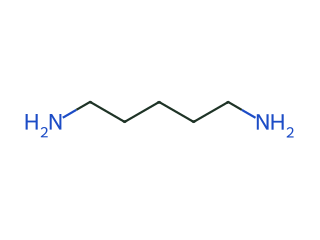 КадаверинCuAO→−NH₃, +H₂O₂; спонтанна циклізація
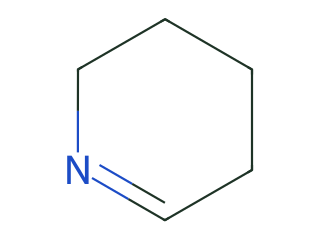 Δ¹-Піперидеїн
3Реакція Манніха
Центральний спосіб створити нові C–C-зв'язки: нуклеофільний карбаніон (з малоніл-КоА, ацетоацетил-КоА чи енамінної форми гетероциклу) атакує електрофільний вуглець імінієвого катіона >C=N⁺<. Так замикаються піролідиновий, тропановий, піперидиновий і хінолізидиновий скелети. Біоміметичний синтез тропінону Робінсона (1917) відтворює саме цей механізм.
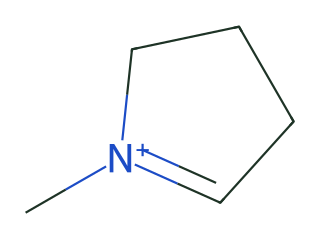 N-Метил-Δ¹-піроліній+ малоніл-КоАPYKS · CYP82M3→Манніх
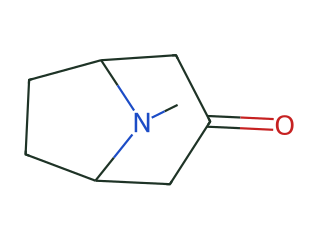 Тропінон
4Реакція Пікте — Шпенглера
Внутрішньомолекулярний варіант Манніха для β-арилетиламінів. Амін (дофамін чи триптамін) конденсується з альдегідом, імінієвий вуглець атакує активоване ароматичне кільце — і замикається тетрагідроізохіноліновий (NCS) або тетрагідро-β-карболіновий (STR) цикл.
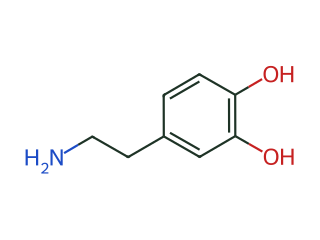 Дофамін+
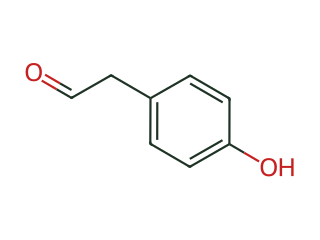 4-HPAANCS→Пікте — Шпенглер
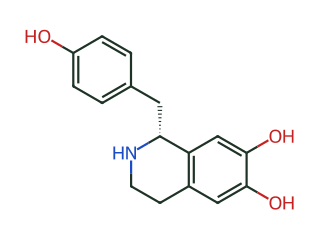 (S)-Норкоклаурин
5Фенольне окисне спряження
Мембранні гем-тіолатні монооксигенази родини цитохрому P450 (CYP80, CYP719, CYP82) генерують фенольні радикали, рекомбінація яких створює складні C–C- та C–O–C-містки: так (R)-ретикулін перетворюється на салутаридин (шлях до морфіну), а два залишки N-метилкоклаурину зшиваються у курареподібні димери.
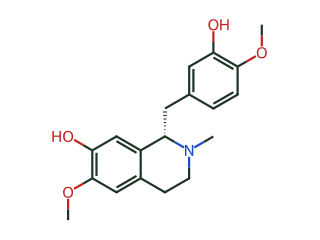 (R)-РетикулінSalSyn · CYP719B1→C–C-спряження
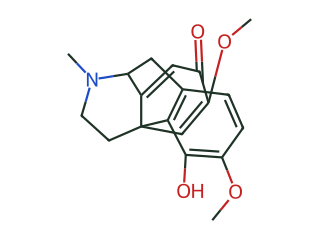 Салутаридин
6Метилювання та окиснення «кінцевих штрихів»
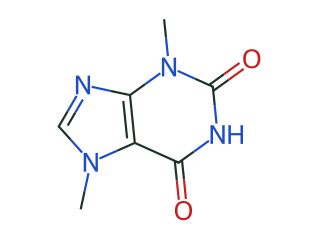
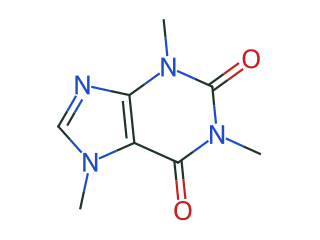
SAM-залежні O- та N-метилтрансферази, флавінзалежні оксидази (наприклад, бербериновий місток BBE) й діоксигенази завершують молекулу, змінюючи її полярність, транспорт і спорідненість до рецепторів. Саме так теобромін перетворюється на кофеїн.
 ТеобромінDXMT · SAM→N-метилювання
 Кофеїн
07Шляхи біосинтезу за амінокислотними попередниками
Нижче всі основні шляхи показано як послідовності сполук із ферментами. Оберіть шлях, а потім крок за кроком (або в режимі автоматичного відтворення) простежте, як з амінокислоти виникає алкалоїд: у кожному кроці наведено фермент, тип реакції та клітинну локалізацію.
Сім шляхів: тропановий, піролізидиновий, хінолізидиновий, морфіновий (БІА), індольний (катарантус), нікотиновий і пуриновий.
7.1Орнітиновий (аргініновий) шлях: піролідинові, тропанові, піролізидинові алкалоїди
Вихідні сполуки — L-орнітин або L-аргінін [8, 9].
- Путресцин і катіон N-метил-Δ¹-піролінію. L-Орнітин декарбоксилює ODC (альтернативно L-аргінін → агматин → N-карбамоїлпутресцин → путресцин за участю ADC). Путресцин-N-метилтрансфераза (PMT) за участю SAM метилює путресцин до N-метилпутресцину — це ключовий регуляторний («committed») крок шляху. Мідь-залежна MPO окиснює його до 4-метиламінобутаналю, що спонтанно циклізується в п'ятичленний катіон N-метил-Δ¹-піролінію.
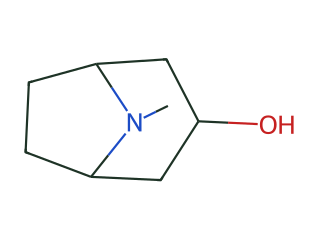
- Тропанова гілка (Solanaceae, Erythroxylaceae). Катіон конденсується з двома молекулами малоніл-КоА за участю нетипової полікетидсинтази III типу PYKS → 4-(1-метил-2-піролідиніл)-3-оксобутанова кислота. Цитохром P450 CYP82M3 (тропінонсинтаза) каталізує внутрішньомолекулярну реакцію Манніха — утворюється біциклічний тропінон. Тут шлях розгалужується двома НАДФН-залежними редуктазами родини SDR: TR-I дає тропін (3α-ОН), TR-II — псевдотропін (3β-ОН).
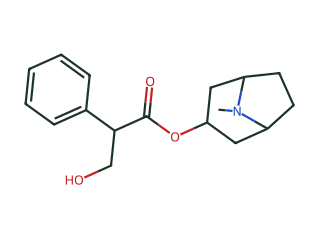
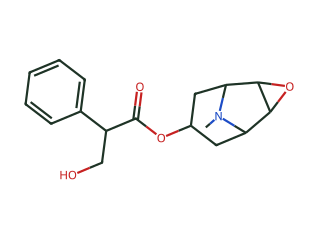
- Гілка тропіну → гіосціамін і скополамін. Тропін естерифікується феніллактоїлглюкозою (з L-Phe через фенілпіруват і феніллактат; фермент PPAR) — SCPL-ацилтрансфераза літоринсинтаза утворює літорин. CYP80F1 (літоринмутаза) вільнорадикально перегруповує літорин у гіосціаміновий альдегід, який відновлюється до l-гіосціаміну (його рацемат — атропін). Завершує каскад 2-оксоглутарат-залежна діоксигеназа H6H: спочатку гідроксилює C6 (6β-гідроксигіосціамін, анісодамін), потім замикає 6,7-епоксидний місток — утворюється скополамін.
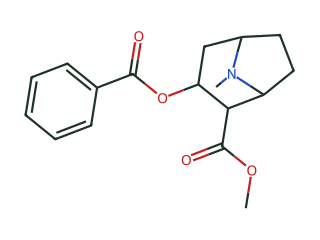
- Гілка псевдотропіну. У пасльонових псевдотропін веде до полігідроксильованих нортропанових калістегінів (інгібіторів глікозидаз). У куща коки (Erythroxylum coca) 3β-екгонінове ядро кокаїну синтезується зовсім іншим набором ферментів (наприклад, метилекгононредуктаза MecgoR з родини альдо-кеторедуктаз; BAHD-ацилтрансфераза кокаїнсинтаза приєднує бензоїл-КоА) — класичний приклад конвергентної еволюції вторинного метаболізму.
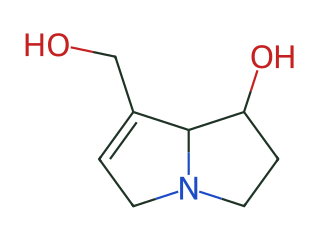
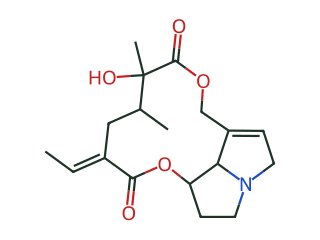
- Піролізидинова гілка (Asteraceae, Boraginaceae, Fabaceae) будується виключно з двох молекул путресцину. Спеціалізована гомоспермідинсинтаза (HSS) — ген, що виник дуплікацією гена дезоксигіпузинсинтази первинного обміну, — переносить амінобутильну групу зі спермідину на путресцин → симетричний тріамін гомоспермідин. Його подвійне окисне дезамінування мідь-залежною амінооксидазою й внутрішньомолекулярна реакція Манніха формують біциклічне ядро й нецинові основи (ретронецин, платинецин, геліотридин). Етерифікація розгалуженими нециновими кислотами (з Ile, Val) дає макроциклічні диефіри — сенеціонін, платифілін, триходесмін [10].
7.2Лізиновий шлях: піперидинові, хінолізидинові й індолізидинові алкалоїди
L-Лізин — гомолог орнітину з додатковою групою –CH₂– — забезпечує побудову шестичленних азотових циклів [8, 11].
- Кадаверин і Δ¹-піперидеїн. У хлоропластах (родини Fabaceae, Campanulaceae, Lythraceae) лізиндекарбоксилаза (LDC) перетворює L-лізин на діамін кадаверин; окисне дезамінування (CuAO) дає 5-амінопентаналь, що спонтанно циклізується в шестичленну основу Шиффа Δ¹-піперидеїн.
- Піперидинові алкалоїди. Конденсація N-метил-Δ¹-піперидеїну з ацетоацетил-КоА дає пелетьєрин (кора граната Punica granatum); приєднання двох фенілпропаноїдних фрагментів (похідних бензоїлоцтової кислоти) до C2 та C6 піперидину формує лобелін (Lobelia inflata), стимулятор дихального центру; у чорному перці піперидин ацилюється піпероїл-КоА за участю піперинсинтази — утворюється піперин; у Sedum — седамін.
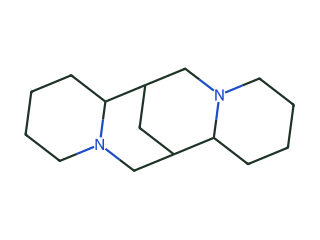
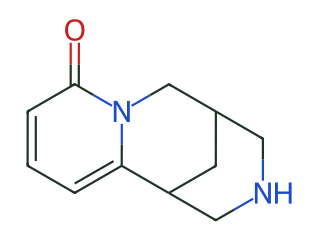
- Хінолізидинові (люпинові) алкалоїди. Біциклічний лупінін будується з двох молекул кадаверину (димеризація Δ¹-піперидеїну за Манніхом, окиснення, відновлення), тетрациклічні спартеїн, пахікарпін (D-спартеїн) і лупанін потребують трьох. У Thermopsis, Cytisus, Baptisia лупанін окисно втрачає чотиривуглецевий фрагмент кільця D — утворюється трициклічний α-піридоновий цитизин (у Laburnum його метилює SAM-залежна цитизин-N-метилтрансфераза). Весь каскад у люпині — від LDC до тетрациклічного ядра — відбувається в стромі хлоропластів мезофілу, де активність ферментів залежить від світлового підлуження (pH 8,0) і тіоредоксинової системи [11].
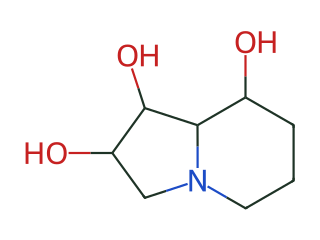
- Індолізидинові алкалоїди (Astragalus, Oxytropis, Swainsona). Замість кадаверинового шляху L-лізин через δ-напівальдегід α-аміноадипінової кислоти перетворюється на циклічну імінокислоту L-піпеколінову кислоту, яка конденсується з малоніл-КоА → бік-кетон 1-індолізидинон; його стереоспецифічне гідроксилювання дає полігідроксиіндолізидини свайнсонін і кастаноспермін — потужні інгібітори α-манозидаз та глюкозидаз процесингу глікопротеїнів.
7.3Тирозин-фенілаланіновий шлях: бензилізохінолінові алкалоїди
Це один із найскладніших і найкраще вивчених шляхів. Він дає понад 2 500 структур бензилізохінолінових алкалоїдів (БІА) у родинах Papaveraceae, Ranunculaceae, Berberidaceae, Menispermaceae [8, 12].
Синтез центрального інтермедіату (S)-ретикуліну
- Пул L-тирозину ділиться на дві гілки: гідроксилювання до L-ДОФА й декарбоксилювання TYDC → нуклеофільний дофамін; трансамінування TAT до 4-гідроксифенілпірувату й декарбоксилювання → електрофільний 4-гідроксифенілацетальдегід (4-HPAA).
- Норкоклауринсинтаза (NCS) каталізує стереоселективну конденсацію Пікте — Шпенглера між ними → (S)-норкоклаурин (історична назва — гігенамін), універсальний попередник усіх БІА.
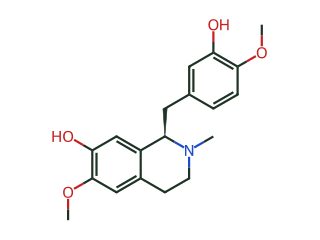
- Чотири кроки — 6OMT (6-O-метилювання), CNMT (N-метилювання), цитохром CYP80B1 (3'-гідроксилювання) та 4'OMT (4'-O-метилювання) — перетворюють норкоклаурин на (S)-ретикулін, центральний вузол розгалуження всього обміну БІА.
Морфінанова гілка у Papaver somniferum
- Щоб синтезувати морфін, (S)-ретикулін мусить інвертувати хіральну конфігурацію. Це робить унікальний дводоменний злитий білок STORR (ретикулінепімераза): P450-домен (CYP82Y2) окиснює (S)-ретикулін до іона 1,2-дегідроретикулінію, а оксидоредуктазний домен (AKR) стереоспецифічно відновлює його до (R)-ретикуліну.
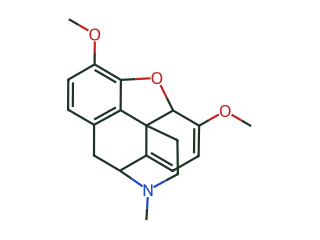
- Салутаридинсинтаза (CYP719B1) здійснює орто-пара фенольне окисне спряження → тетрациклічний скелет морфінану — салутаридин. SalR (НАДФН) відновлює кетогрупу до (7S)-салутаридинолу, SalAT (BAHD-ацетилтрансфераза) ацетилює його; ацетат відщеплюється спонтанно або за участю тебаїнсинтази з замиканням оксидного містка → перший пентациклічний опіат тебаїн.
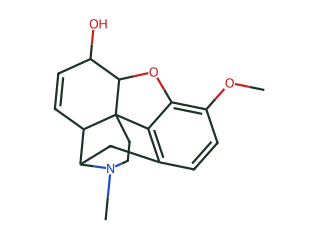
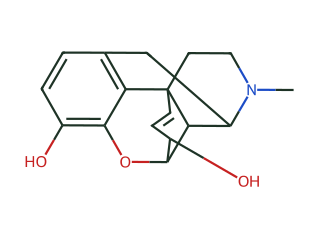
- У молочниках T6ODM (2-оксоглутарат/Fe²⁺-деметилаза) перетворює тебаїн на непінон і кодеїнон, COR (альдо-кеторедуктаза) відновлює кодеїнон до кодеїну, а CODM відщеплює 3-O-метильну групу → морфін [13].
Протоберберинова, бензофенантридинова, апорфінова й інші гілки
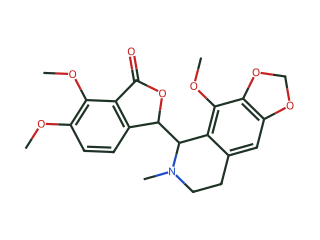
- Берберин, носкапін. Флавопротеїнова оксидаза BBE окисно циклізує N-метильну групу (S)-ретикуліну, створюючи «бербериновий місток» і тетрациклічний (S)-скоулерин. Далі S9OMT → (S)-тетрагідроколумбамін; канадинсинтаза (CYP719) замикає метилендіоксидний місток → (S)-канадин; STOX окиснює його до четвертинного берберину. У маку натомість канадин через каскад P450 (CYP82Y1, CYP82X1/2), ацетилтрансферази, O-метилтрансферази і носкапінсинтазу (NOS/SDR1) перетворюється на носкапін [14].
- Протопін, сангвінарин, хелідонін. P450 CFS (CYP719A25) і SPS (CYP719A20) послідовно утворюють два метилендіоксидні кільця — (S)-стилопін; N-метилювання TNMT і гідроксилювання MSH (CYP82N4) розкривають зв'язок C–N → десятичленне кільце протопіну; P6H (CYP82N2) і оксидаза DBOX ведуть до сангвінарину.
- Апорфіни й бісбензилізохіноліни. CYP80G2 (коритуберинсинтаза) здійснює пряме внутрішньомолекулярне C–C-спряження → апорфіни (коритуберин, глауцин, ліріоденін, болдин, апоморфін); CYP80A1 міжмолекулярно зшиває дві молекули N-метилкоклаурину C–O–C-містком → димери (бербамін, тетрандрин, D-тубокурарин).
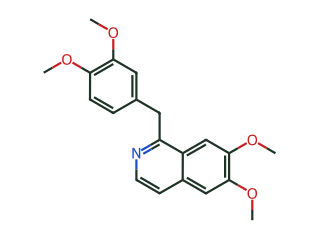
- Папаверин. Повне O-метилювання (N7OMT, 3'OMT) і дегідрування оксидазою тетрагідропапаверину (TPOX).
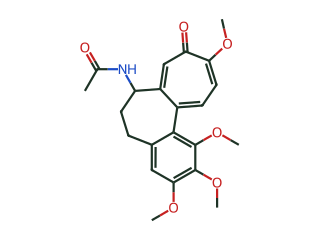
- Колхіцин (Colchicum autumnale, Gloriosa superba). Дофамін конденсується з 4-гідроксидигідрокоричним альдегідом (похідним L-Phe) → фенетил-ізохіноліновий (S)-аутумналін. Пара-пара фенольне спряження (GsCYP75A110) → ізоандроцимбін, O-метилювання, а унікальне окисне розширення шестичленного дієнонового кільця до семичленного ароматичного трополонового (P450 GsCYP71FB1) завершує синтез колхіцину.
7.4Триптофановий шлях: індольні, β-карболінові й хінінові алкалоїди
Початкова реакція для понад 3 000–4 000 індольних алкалоїдів — PLP-залежне декарбоксилювання L-триптофану цитозольною триптофандекарбоксилазою (TDC) з утворенням триптаміну [8, 3].
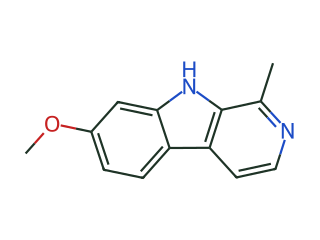
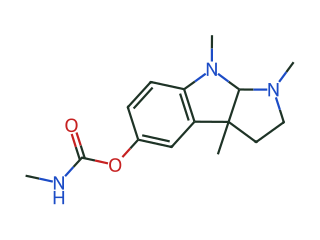
- Прості індоли, β-карболіни, піролоіндоли. Гідроксилювання й метилювання триптаміну → серотонін, диметилтриптамін, грамін (ячмінь). Пікте — Шпенглер між триптаміном і ацетальдегідом чи α-кетокислотами (з наступним окисненням та декарбоксилюванням) дає β-карболіни гарман, гармін, гармалін (Peganum harmala, Passiflora incarnata). У калабарських бобах (Physostigma venenosum) метилювання C3-положення індолу з циклізацією бічного ланцюга й N-карбамоїлюванням веде до піролоіндолу фізостигміну (езерину).
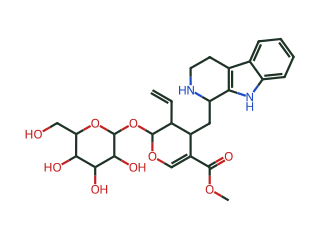
- Складні індольні алкалоїди — стриктозидиновий вузол (Apocynaceae, Loganiaceae, Rubiaceae). Вакуолярна стриктозидинсинтаза (STR) конденсує триптамін із C₁₀-альдегідом секологаніном за Пікте — Шпенглером → універсальний попередник (S)-стриктозидин. Після експорту з вакуолі стриктозидин-β-глюкозидаза (SGD), що утворює захисний мультимерний метаболон у ядрі, відщеплює глюкозу — виникає високореакційний аглікон. Далі алкогольдегідрогенази й P450 перегруповують його у три основні родини:
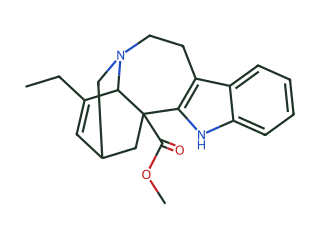
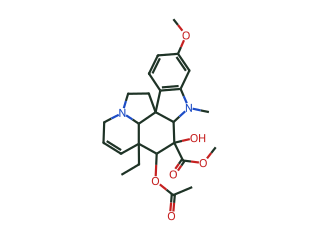
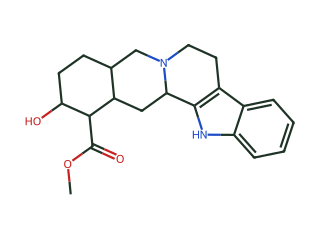
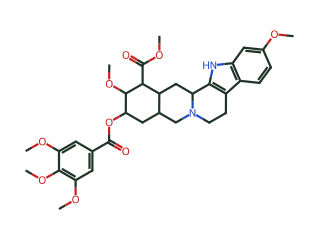
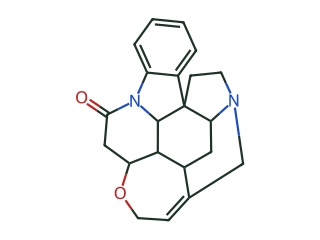
- тип Corynanthe / Strychnos: аймаліцин, резерпін, йохімбін, аймалін (віноринсинтаза та перакінредуктаза в Rauvolfia), акуаміцин, стрихнін і бруцин (Strychnos nux-vomica);
- типи Aspidosperma та Iboga: через стемаденін, його O-ацетилювання й окиснення утворюється нестабільний дегідросекодин, який зазнає внутрішньомолекулярної реакції Дільса — Альдера у двох напрямках → таберсонін (Aspidosperma) і катарантин (Iboga).
- Віндолін і вінбластин у катарантусі. Таберсонін проходить 7-стадійний шлях: 16-гідроксилювання (CYP71D12/T16H) → 16-O-метилювання (16OMT) → C3-окиснення (T3O) → відновлення C2/C3 (T3R) → N-метилювання (NMT) → C4-гідроксилювання (D4H) → C4-O-ацетилювання (DAT) — результат віндолін. На фінальному етапі вакуолярна пероксидаза PRX1 окисно димеризує катарантин і віндолін в ангідровінбластин, з якого утворюються протипухлинні бісіндоли вінбластин і вінкристин [15]. У Vinca minor епоксидування 16-метокситаберсоніну веде до ебурнаміну й ноотропного вінкаміну.
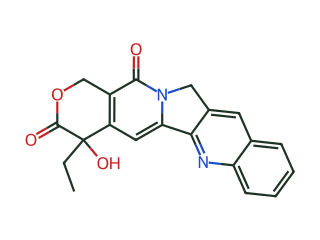
- Від індолу до хіноліну — хінін. У корі Cinchona стриктозидин перетворюється на коринантеаль, у якому окисно розщеплюється п'ятичленне пірольне кільце індолу й рециклізується з атомом азоту триптамінового ланцюга у шестичленне хінолінове кільце (через цинхонінон) → хінін, хінідин, цинхонін, цинхонідин. Подібним чином, але в іншому напрямку, утворюється й камптотецин.
7.5Нікотинова й антранілова кислоти, гістидин, пурини
Піридинові алкалоїди (шлях L-аспартату та нікотинової кислоти)
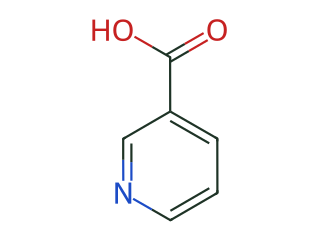
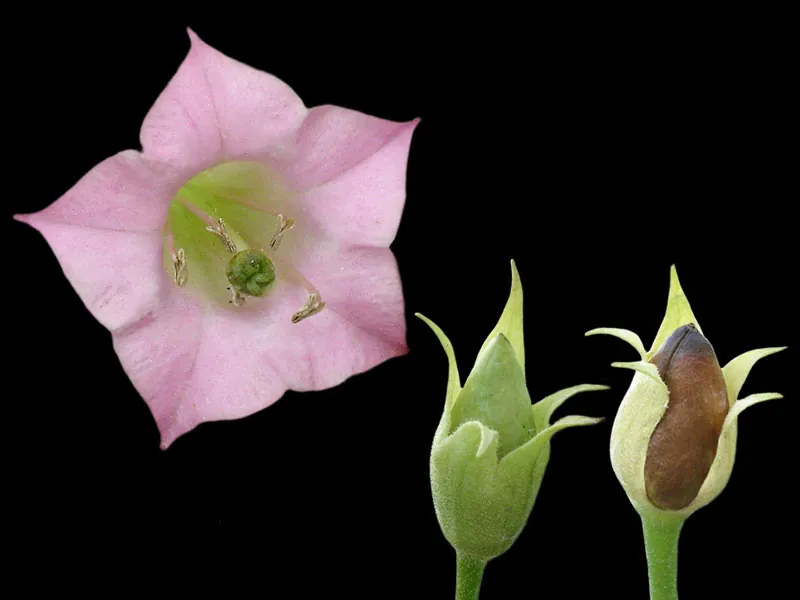
На відміну від тварин і грибів, де нікотинова кислота синтезується з триптофану кінуреніновим шляхом, у вищих рослин піридинове кільце утворюється з L-аспартату і гліцеральдегід-3-фосфату (через іміносукцинат і хінолінову кислоту — аспартатоксидаза, хінолінатсинтаза, хінолінатфосфорибозилтрансфераза). N-Метилювання нікотинової кислоти дає тригонелін (пажитник, зерна кави), відновлення й модифікації — ареколін і ціанопіридоновий рицинін. У коренях тютюну нікотинова кислота через 3,6-дигідронікотинову кислоту перетворюється на 1,2-дигідропіридин — нуклеофіл, що конденсується (ферменти A622 та берберинмістковоподібні оксидази BBL) з електрофільним катіоном N-метилпіролінію (з орнітину) → нікотин. Якщо замість піролінію приєднується лізин-похідний Δ¹-піперидеїн, виникає анабазин (Anabasis aphylla, Nicotiana glauca).
Хінолінові, хіназолінові й акридинові алкалоїди (антранілова кислота)
Антранілова кислота (2-амінобензойна; інтермедіат шикіматного шляху) — пряма попередниця трьох класів гетероциклів родин Rutaceae, Zygophyllaceae, Acanthaceae. Конденсація антранілоїл-КоА з малоніл-КоА → 2,4-дигідроксихінолін → прості хінолінові (куспарин, ехінопсин) та фуранохінолінові (диктамнін, скіміанін, фагарин) алкалоїди. N-Метилантранілоїл-КоА з трьома малоніл-КоА за участю акридонсинтази (полікетидсинтаза III типу) дає трициклічне ядро акридинових алкалоїдів (рутакридон, акроніцин). Поєднання антранілової кислоти з похідним орнітину (піролідином) веде до хіназолінових вазицину (пеганіну) та вазицинону (Adhatoda vasica, Peganum harmala) і фебрифугіну (Dichroa febrifuga).
Імідазольні алкалоїди (L-гістидин)
L-Гістидин вже містить готове імідазольне кільце, тож біосинтез не потребує замикання гетероциклу de novo. Декарбоксилювання (HDC) дає гістамін; поєднання гістидинового фрагмента з похідним L-треоніну чи масляної кислоти, замикання γ-лактонного кільця й N-метилювання імідазолу в листках Pilocarpus microphyllus веде до пілокарпіну та пілозину.
Пуринові алкалоїди (ксантозин, цикл SAM)
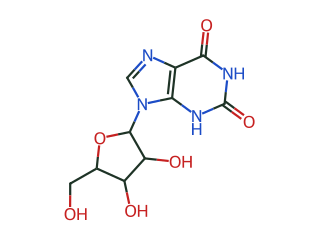
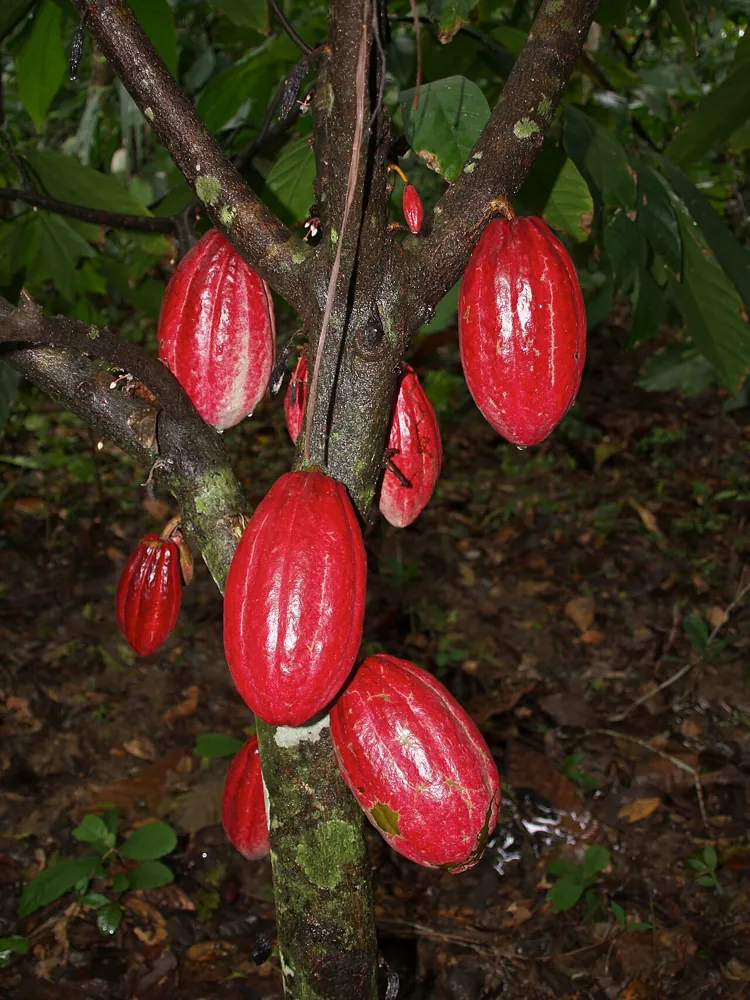
Каркас пуринових алкалоїдів будується в первинному обміні нуклеотидів (ІМФ → ГМФ → гуанозин → ксантозин). У молодих листках і плодах кавового дерева, чаю, какао, мате, гуарани чотири послідовні кроки каталізують SAM-залежні N-метилтрансферази та нуклеозидаза [16]:
- XMT (7-метилксантозинсинтаза) метилює ксантозин у N7 → 7-метилксантозин;
- N-метилнуклеозидаза відщеплює рибозу → 7-метилксантин;
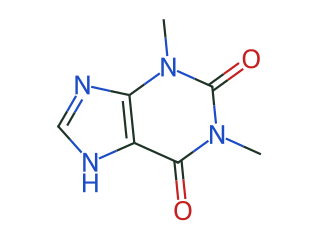
- MXMT (теобромінсинтаза) метилює N3 → теобромін (3,7-диметилксантин — головний алкалоїд какао);
- DXMT (кофеїнсинтаза, біфункційна NMT) метилює N1 → кофеїн (1,3,7-триметилксантин); паралельне метилювання ксантину у N1 та N3 дає теофілін.
08Диверсифікація скелета: «кінцеві штрихи»
Після формування базового вуглецево-азотного скелета молекули зазнають каскаду специфічних ферментативних модифікацій (tailoring reactions), які радикально змінюють їхню полярність, стабільність, транспорт, спорідненість до рецепторів і токсичність [1]. Є п'ять головних класів таких реакцій.
Оберіть тип реакції — побачите ферменти, кофактори й приклади.
Таблиця: типи модифікацій, ферменти, кофактори, приклади
| # | Тип реакції | Родини ферментів | Кофактори / донори | Значення й приклади |
|---|---|---|---|---|
| 1 | Метилювання (O- та N-) | O-метилтрансферази (OMT), N-метилтрансферази (NMT); С-кінцева складка Россмана | S-аденозил-L-метіонін (SAM → SAH, механізм SN2) | Знижує полярність, стабілізує реакційні фенольні й амінні групи, знижує цитотоксичність, спрямовує регіоселективність циклізацій. 6OMT, CNMT, 4'OMT у синтезі ретикуліну; кофеїнсинтаза; цитизин-N-метилтрансфераза. |
| 2 | Глікозилювання | УДФ-глікозилтрансферази (UGT); консервативний C-кінцевий PSPG-мотив із 44 амінокислот | УДФ-глюкоза, УДФ-рамноза, -галактоза, -ксилоза, -глюкуронова кислота | Підвищує розчинність і стабільність, забезпечує розпізнавання вакуолярними транспортерами, захищає рослинну клітину від аутотоксичності (стриктозидин у C. roseus, глікозиди протоберберинів). |
| 3 | Ацилювання | Цитозольні BAHD-ацилтрансферази; вакуолярні SCPL-ацилтрансферази (серинкарбоксипептидазоподібні) | Ацил-КоА-тіоефіри (ацетил-, бензоїл-КоА) для BAHD; 1-O-β-глюкозні ефіри кислот для SCPL | Створює складні ефіри, критичні для активності: SalAT (тебаїн), віноринсинтаза (аймалін), кокаїнсинтаза, DAT (віндолін) — BAHD; літоринсинтаза — SCPL. |
| 4 | Окиснення, гідроксилювання, епоксидування, деметилювання | Цитохроми P450 (CYP), 2-оксоглутарат/Fe²⁺-залежні діоксигенази (2-ODD), флавопротеїнові оксидази | Гем, O₂, НАДФН (через CPR); 2-оксоглутарат, Fe²⁺, аскорбат (2-ODD); ФАД (оксидази) | Регіо- й стереоспецифічне введення –OH, C–C- та C–O-зшивки, метилендіоксидні та епоксидні містки. CYP80B1, CYP80G2, CYP719; H6H, T6ODM, CODM; BBE, STOX, DBOX, TPOX. |
| 5 | Відновлення | Коротколанцюгові дегідрогенази/редуктази (SDR), альдо-кеторедуктази (AKR) | НАД(Ф)Н — донор гідрид-іона й електронів | Стереоспецифічне відновлення C=O, C=C, C=N. SDR: TR-I, TR-II, SalR, NOS/SDR1; AKR: COR, перакінредуктаза в Rauvolfia. |
09Просторова організація біосинтезу
Одна з найвизначніших закономірностей вторинного метаболізму, виявлена імуноцитохімією, флуоресцентним мічення білків (GFP) і транскриптомікою поодиноких клітин, — сувора просторова сегрегація біосинтезу та зберігання. Жоден складний алкалоїд не будується в межах однієї органели від початку до кінця: проміжні сполуки постійно переходять через внутрішньоклітинні мембрани [17, 18].
9.1Розподіл ферментативних каскадів між органелами
Натискайте на органели — побачите, які ферменти й реакції в них відбуваються.
- Строма хлоропластів (пластиди) — de novo синтез амінокислотних попередників (L-лізин діамінопімелатним шляхом, L-Trp, L-Tyr, L-Phe шикіматним). У люпині весь каскад хінолізидинових алкалоїдів — від LDC до тетрациклічного ядра лупаніну — локалізований у стромі зелених хлоропластів мезофілу листка; активність ферментів регулюється світловим зсувом pH до 8,0 і тіоредоксиновою системою.
- Цитозоль — більшість розчинних PLP-залежних декарбоксилаз (TYDC, TDC, ODC), SAM-залежних метилтрансфераз (PMT, 6OMT, CNMT, 4'OMT, XMT/DXMT), 2-оксоглутарат-залежних діоксигеназ (H6H, T6ODM, CODM) і НАДФН-залежних редуктаз (TR-I, TR-II, COR).
- Ендоплазматичний ретикулум — усі цитохром P450 (CYP80B1, CYP80F1, CYP719B1, CYP82M3, STORR): інтегральні мембранні білки, заякорені гідрофобним N-кінцем у цитозольній поверхні гладкого ЕР, де вони збираються в мультиферментні комплекси — метаболони (метаболічне каналювання). Бербериновий місток BBE з N-кінцевим сигнальним пептидом спрямовується в люмен ЕР і зосереджується в алкалоїдних субвакуолярних везикулах (0,1–0,3 мкм), захищаючи цитозоль від H₂O₂ реакції [19].
- Ядро — деглікозилювання стриктозидину мультимерами SGD, що утворюють захисний метаболон.
- Центральна вакуоля й тонопласт — у катарантусі стриктозидинсинтаза STR міститься всередині вакуолі: цитозольний триптамін транспортується крізь тонопласт, конденсується до стриктозидину, який знову експортується в цитозоль/ядро до SGD; кінцеві продукти (вінбластин, серпентин, аймаліцин) закачуються у вакуолі ідіобластів як у фінальне депо [2].
9.2Кооперація клітин і дальній транспорт
На тканинному й органному рівнях місце первинного синтезу («джерело») часто не збігається з місцем накопичення («стік»).
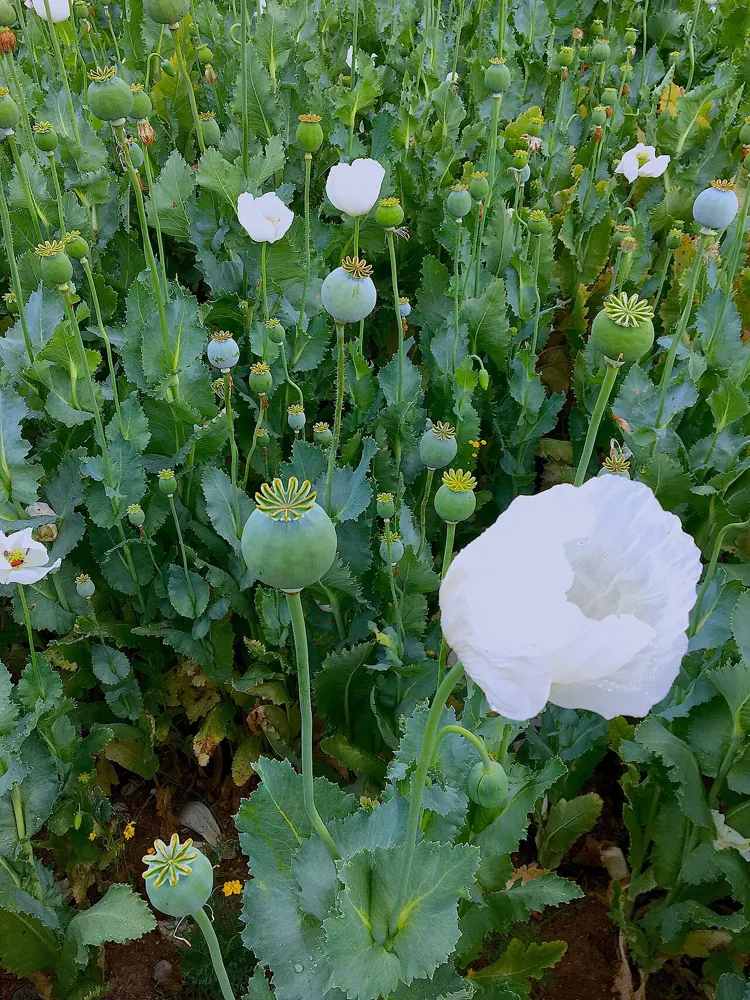
- Мак снодійний: транскрипти генів біосинтезу БІА експресуються в клітинах-супутницях флоеми; ферменти ранніх і середніх етапів (NCS, 6OMT, CNMT, CYP80B1, BBE, SalSyn) працюють у ситоподібних елементах; фінальні ферменти (T6ODM, CODM, COR) і накопичення морфіну — в членистих молочниках (laticifers), де утворюється опійний латекс (морфіну в ньому до 10–22 % сухої маси) [13].
- Катарантус рожевий: початкові кроки — в клітинах внутрішньої флоеми (IPAP-клітини), проміжні (стриктозидин, катарантин) — у верхньому й нижньому епідермісі листка, фінальні (віндолін, серпентин, димеризація у вінбластин) — у спеціалізованих клітинах-ідіобластах і молочниках [2].
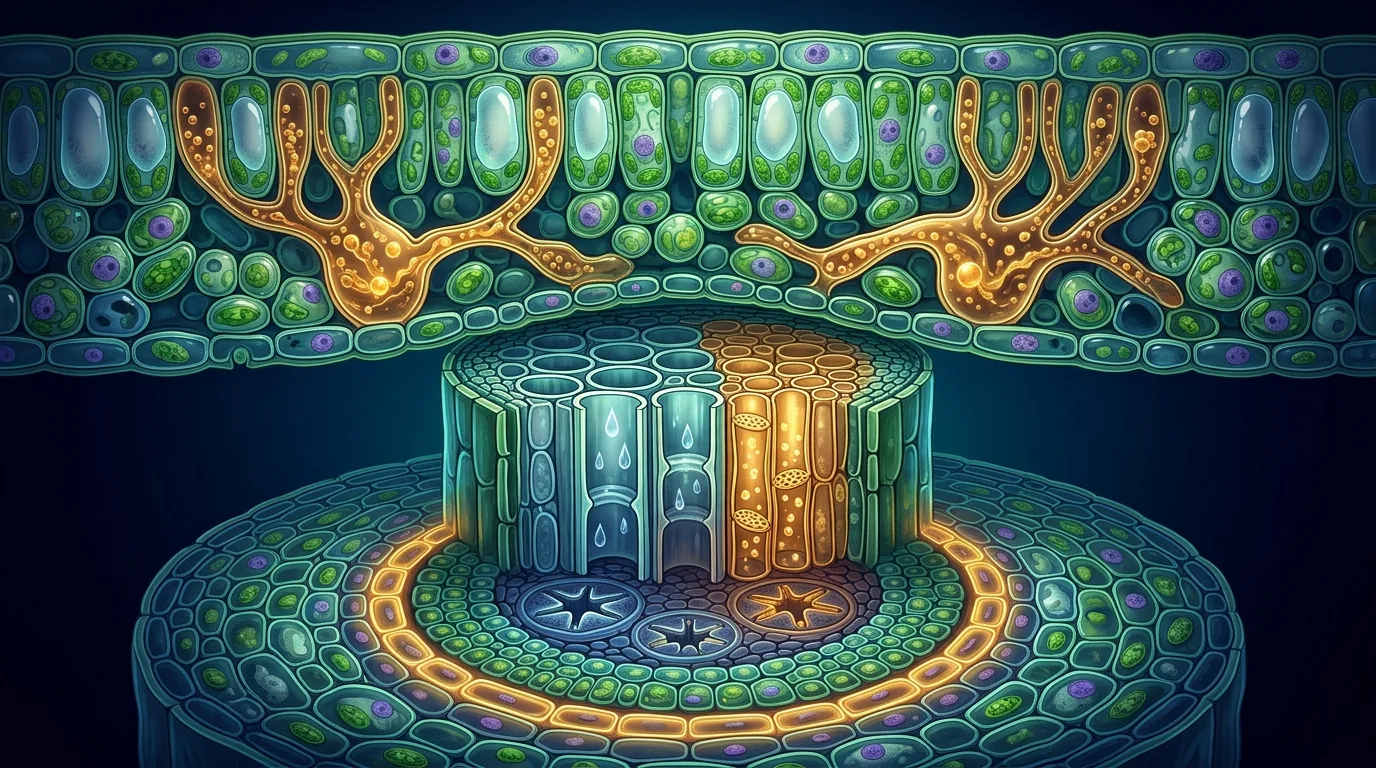
- Пасльонові (Atropa belladonna, Hyoscyamus niger, Nicotiana): початковий фермент PMT і кінцевий H6H експресуються лише в клітинах перициклу кореня (поряд з первинною ксилемою), проміжна TR-I — в ендодермі та внутрішній корі. Готові гіосціамін, скополамін, нікотин завантажуються в апопластний потік ксилеми й із транспіраційним струмом підіймаються в листки, стебла, плоди, де депонуються у вакуолях епідермальних і мезофільних клітин. Класичні щеплення це підтверджують: пагін томата (нікотину не синтезує) на підщепі тютюну чи дурману накопичує нікотин або гіосціамін, а пагін тютюну чи беладони на корені томата лишається практично безалкалоїдним [9, 2].
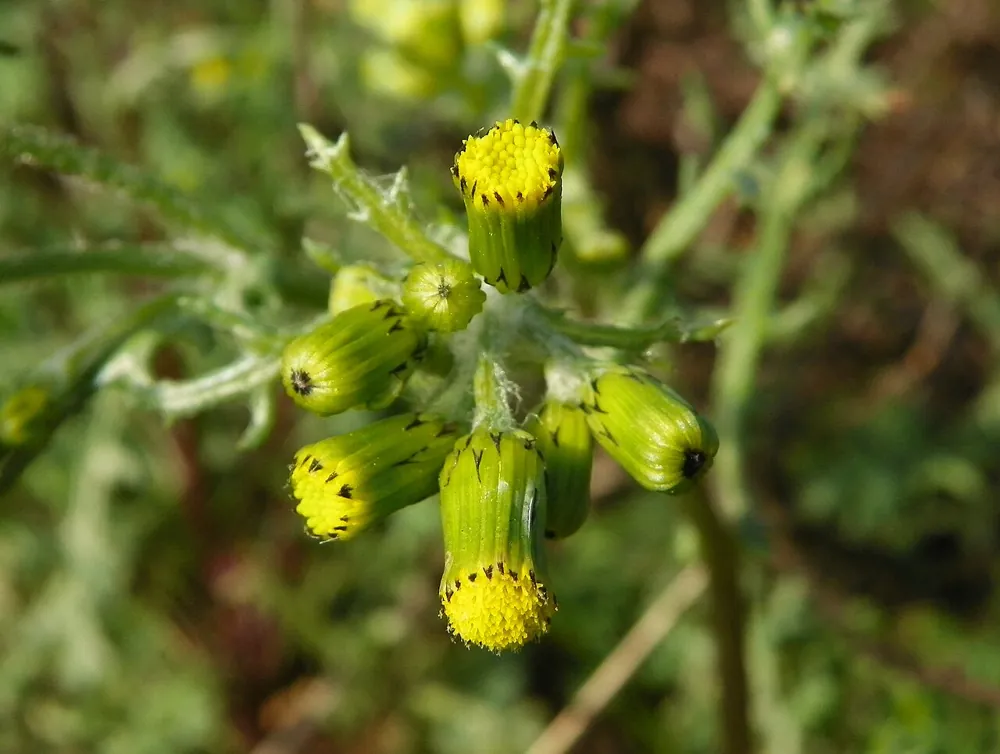
- Піролізидинові алкалоїди (хрестовник Senecio) синтезуються в ендодермі та перициклі кінчиків коренів виключно у вигляді полярних водорозчинних N-оксидів (сенеціонін N-оксид), які не дифундують крізь мембрани й транспортуються не ксилемою, а флоемою до суцвіть, де їхній вміст у 10–30 разів вищий, ніж у вегетативному листі [20, 21].
- Люпин: хінолізидини синтезуються в листкових хлоропластах й експортуються флоемою в стручки та дозріле насіння (до 4–5 % сухої маси) [11].
Оберіть рослину: схема покаже органи-«джерела», шлях транспорту й органи-«стоки».
9.3Вакуолярна «іонна пастка»
Чому рослина, що накопичує колхіцин, вінбластин чи берберин, не отруює власні ферменти, рибосоми й мікротрубочки? Головний механізм самозахисту — ізоляція алкалоїдів у центральній вакуолі завдяки різниці pH між цитозолем (7,2–7,4) і вакуолярним соком (4,5–5,5), яку підтримують протонні помпи тонопласта V-ATPase і V-PPase [21].
Більшість третинних алкалоїдів — слабкі основи (pKa ≈ 7,5–9,5). У нейтральному цитозолі (pH 7,3) 5–20 % молекул перебуває у ліпофільній недисоційованій формі [Alk], що дифундує крізь ліпідний бішар чи переноситься спеціалізованими переносниками. Потрапивши у вакуолю (pH ≈ 5), основа миттєво протонується до гідрофільного катіона [Alk–H]⁺ (понад 99,5 % за рівнянням Гендерсона — Гассельбаха), для якого тонопласт непроникний. У вакуолі катіони утворюють стабільні іонні пари з органічними кислотами (яблучною, лимонною, щавлевою, бурштиновою), специфічними кислотами (меконовою в маку, хінною в хінному дереві, хелідоновою в чистотілі) та дубильними речовинами.
Крім пасивної пастки, є й активне закачування: вторинно-активні H⁺/алкалоїдні антипортери родини MATE (NtJAT1, NtMATE1/2 у тютюну, CrMATE1 у катарантуса), АТФ-залежні ABC-транспортери (ABCB1, ABCC2 у Coptis japonica) і пермеази поглинання пуринів (PUP) [22, 23].
Модель показує, скільки молекули вибраного алкалоїду в мембранопроникній формі в цитозолі (pH 7,3) та у вакуолі (pH 5,0).
10Виділення й аналітична детекція
10.1Виділення за Стасом — Отто: кислота, луг, органіка
Класичний метод ґрунтується на перемиканні pH між формою солі (у воді) та формою вільної основи (в органічній фазі) [3]. Проходьте етапи схеми — на кожному видно, у якій фазі перебуває алкалоїд:
Натискайте на етапи або на кнопки «далі» / «назад».
Виняток: фенольні алкалоїди Морфін містить одночасно основний третинний азот і кислу фенольну –OH при C3. У надлишку сильного лугу (NaOH, KOH; pH > 11) він знову розчиняється у воді як фенолят (морфінат) і не екстрагується хлороформом. Тому для кількісного виділення використовують слабкі основи: розчин NH₄OH чи гідрокарбонат натрію за суворого контролю pH ≈ 8,5–9,0.
10.2Групові осадові та специфічні кольорові реакції
У фармакопейному й фітохімічному аналізі ідентифікація має два етапи: 1) загальноосадові (групові) реакції у слабкокислому середовищі, де катіон алкалоїду утворює нерозчинні асоціати з важкими аніонами (комплексні солі Bi, Hg, Cd, полійодиди, гетерополікислоти, поліфеноли); 2) специфічні кольорові реакції з концентрованими кислотами й окисниками, що руйнують чи окиснюють конкретний гетероцикл із утворенням забарвлених хромофорів.
Оберіть зразок і реактив — пробірка змінить колір, а під нею з'явиться пояснення.
Таблиця реактивів: склад, механізм, ефект, застосування
| Реактив / проба | Склад | Тип і механізм | Ефект | Особливості |
|---|---|---|---|---|
| Драгендорфа | K[BiI₄] у розведеній кислоті | загальноосадова: [Alk–H]⁺[BiI₄]⁻ | яскравий помаранчево-червоний аморфний осад | найчутливіший універсальний реактив для пробірок і проявлення хроматограм (ТШХ) |
| Майєра | K₂[HgI₄] (HgCl₂ + KI) | загальноосадова: комплексна сіль ртуті | білий чи кремовий сирнистий осад, розчинний у спирті | осаджує майже всі справжні алкалоїди, крім пуринових і колхіцину |
| Вагнера — Бушарда | I₂ у KI (K[I₃]) | загальноосадова: нерозчинні полійодиди | темно-бурий осад | високочутлива групова проба |
| Хагера | насичений розчин пікринової кислоти | загальноосадова: кристалічні пікрати | жовтий кристалічний осад із чіткою т. пл. | мікрокристалоскопічна ідентифікація за формою кристалів |
| Марме | K₂[CdI₄] | загальноосадова: комплексний йодид кадмію | білий чи жовтуватий осад, розчинний у надлишку реактиву | допоміжна реакція для диференціації третинних основ |
| Зонненшейна, Шейблера | фосфорномолібденова H₃[PMo₁₂O₄₀] чи фосфорновольфрамова кислота | загальноосадова: гетерополікислоти | жовтуватий чи білий осад (синіє при відновленні) | висока чутливість; осаджує також білки, потрібне попереднє очищення |
| Розчин таніну | 5–10 % свіжий водний розчин | загальноосадова: нерозчинні танати | білий чи жовтувато-сірий осад, розчинний у спирті | основа застосування таніну й міцного чаю як антидоту при отруєннях алкалоїдами |
| Віталі — Морена | димляча HNO₃ (випарювання) + спиртовий KOH і ацетон | специфічна кольорова: нітрування тропової кислоти | інтенсивне фіолетове забарвлення хіноїдного аніона | високоспецифічна проба на тропанові естери тропової кислоти (атропін, гіосціамін, скополамін) |
| Мурексидна | окиснення HCl + KClO₃ чи H₂O₂ на водяній бані, потім NH₄OH | специфічна кольорова: утворення мурексиду (пурпурату амонію) | пурпурово-червоне забарвлення | пуринові алкалоїди — кофеїн, теобромін, теофілін |
| Маркі, Фреде, Манделіна | конц. H₂SO₄ + формальдегід (Маркі), молібдат (Фреде), ванадат (Манделіна) | специфічні кольорові: дегідратація й окиснення | пурпурово-фіолетове (морфін із Маркі), синє, смарагдово-зелене | диференціювання морфінанових, ізохінолінових та індольних алкалоїдів (стрихнін) |
11Екологічні функції в рослині
11.1Від «азотистих шлаків» до хімічної зброї
На початку XX ст. у фізіології рослин панувала гіпотеза, що алкалоїди — інертні кінцеві продукти азотного обміну, подібні до сечовини чи сечової кислоти: рослина без видільної системи ізолює їх у вакуолях і позбувається разом з опалим листям. Її спростували [2, 17]:
- Вміст алкалоїдів не наростає монотонно з віком, а зазнає виразних добових (циркадних) та онтогенетичних коливань: період напіврозпаду нікотину чи морфіну в живій тканині — від кількох годин до кількох діб.
- Синтез 1 г алкалоїду коштує величезних витрат АТФ, НАДФН, дефіцитного відновленого азоту й праці десятків ферментів і транспортерів. З еволюційного погляду це неможливо без потужної селективної переваги. За теорією оптимального захисту (МакКі) рослина концентрує захисні метаболіти там, де втрати найболючіші: у молодих пагонах, квітках, незрілих плодах і насінні.
- В експериментах із ¹⁵N показано, що алкалоїди дозріваючого насіння бобових і кави в перші доби проростання активно катаболізуються, постачаючи азот молодому проростку.
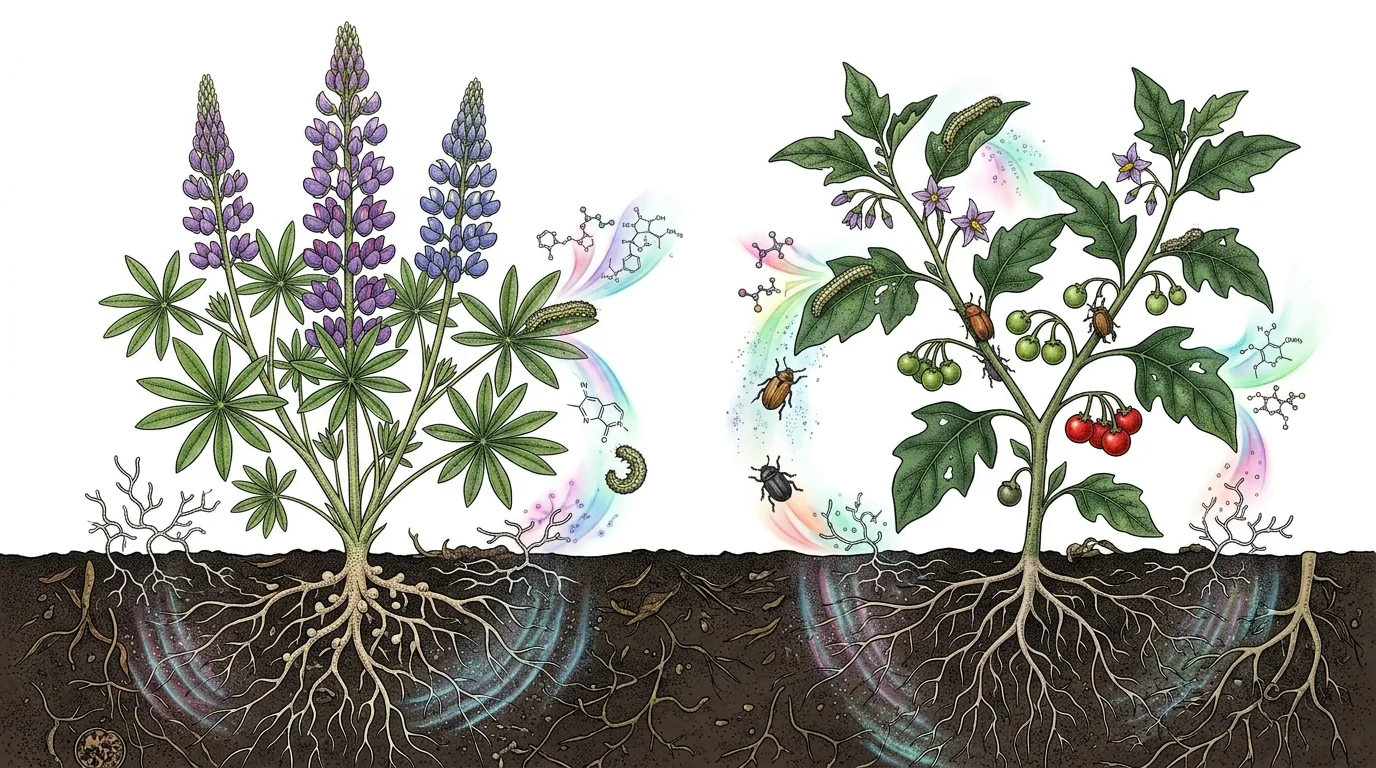
Дослідження М. Вінка й колег довели, що біосинтез алкалоїдів підтримує природний добір завдяки їхній адаптивній функції — хімічному захисту від фітофагів, патогенів і конкурентів. Це «хімічний арсенал» нерухомих рослин, що замінює їм імунну систему та поведінкову втечу.
11.2Молекулярна мімікрія нейромедіаторів
І фітофаги (комахи, молюски, травоїдні ссавці), і рослини користуються тими самими протеїногенними L-амінокислотами. У ході коеволюції рослини відібрали такі шляхи модифікації тирозину, триптофану, орнітину, лізину й гістидину, які перетворюють їх на конформаційно жорсткі аналоги (міметики) нейромедіаторів тварин — ацетилхоліну, норадреналіну, дофаміну, серотоніну, ГАМК, гліцину, глутамату [17]. Просторова фіксація зарядженого атома азоту й ароматичних кілець дозволяє алкалоїду зв'язуватися з активним центром рецептора чи ферменту міцніше за природний ліганд — наслідком стають параліч, судоми, зупинка дихання або сильна гіркота (активація рецепторів гіркого смаку T2R у хребетних і Gr у комах).
Оберіть нейромедіатор або мішень — побачите його структуру, алкалоїди-«двійники» та наслідки для фітофага.
11.3Інші мішені в клітинах фітофагів
- Ацетилхолінестераза. Лупінін, фізостигмін (карбамоїлює активний центр) і галантамін оборотно блокують розщеплення ацетилхоліну — виникає холінергічний криз і загибель комах (зокрема попелиці Aphis citricola).
- Глікозидази. Індолізидиновий свайнсонін астрагалу й гострокільниці незворотно інгібує α-манозидазу II апарату Гольджі (IC₅₀ ≈ 34 нМ) і лізосомальну α-манозидазу, порушуючи процесинг N-гліканів — важке неврологічне отруєння худоби (локоїзм, locoweed poisoning) [1].
- Біоактивація піролізидинів. У печінці травоїдних цитохроми P450 окиснюють сенеціонін до реакційних пірольних естерів, що алкілюють ДНК і білки, викликаючи гепатотоксичність і венооклюзійний некроз печінки [10].
- Цитоскелет. Колхіцин і вінкаалкалоїди зв'язуються з β-тубуліном і блокують полімеризацію мікротрубочок веретена — мітоз зупиняється (наприклад, у воскової молі Galleria mellonella).
- ДНК, топоізомерази, рибосоми. Плоскі поліциклічні катіони берберину, сангвінарину, пальматину, гарміну, диктамніну й фуранохінолінів інтеркалюють між парами основ ДНК; камптотецин стабілізує ковалентний комплекс топоізомерази I з ДНК; еметин пригнічує синтез білка на рибосомах.
- Гіркий смак. Майже всі алкалоїди активують рецептори гіркого смаку — сигналізують про токсичність ще до проковтування великої дози.
11.4Індукований захист і жасмонатний сигнал
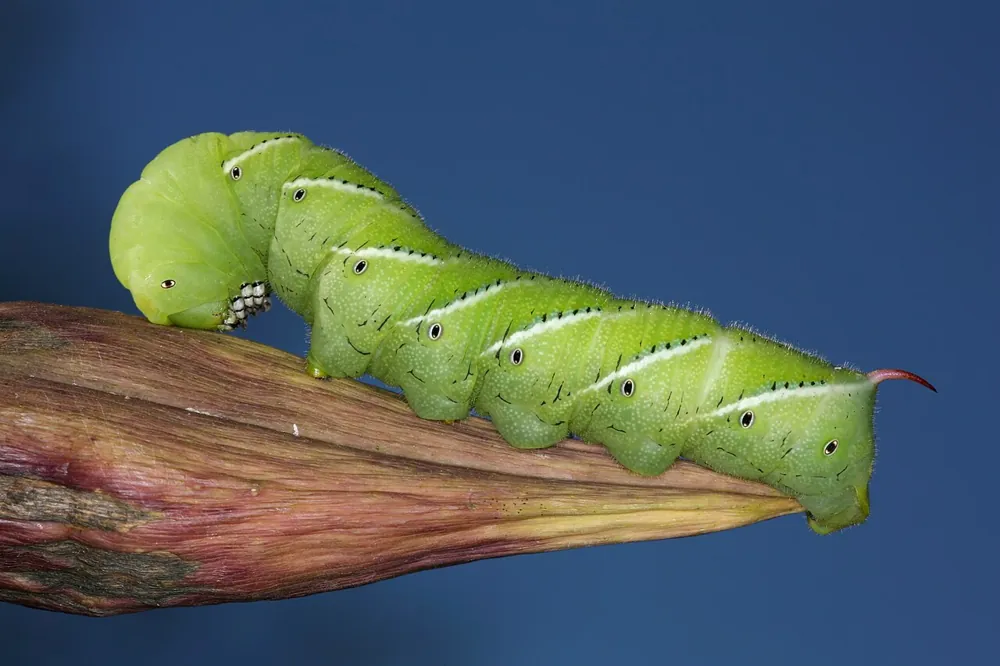
Поряд із конститутивним накопиченням у багатьох рослин синтез алкалоїдів різко зростає після ушкодження листя гусеницями. Так, у Nicotiana sylvestris поранення індукує жасмонову кислоту (JA) та її метиловий естер MeJA. Цей сигнал транспортується флоемою в корені, активує транскрипційні фактори родин ERF/MYC2, підвищує експресію генів PMT та QPT, і концентрація нікотину в листі зростає в 4–10 разів протягом 48–72 годин. Польові експерименти з диким тютюном із пригніченим синтезом нікотину показали, що без нього рослини зазнають масового знищення личинками комах [24, 2].
Проходьте стадії — анімація покаже шлях сигналу між листком і коренем.
11.5Коеволюція зі спеціалістами
Неспеціалізовані травоїдні (генералісти) страждають від алкалоїдів, але комахи-монофаги виробили механізми подолання бар'єра й навіть запозичили алкалоїди для власного захисту від птахів і павуків [10, 20]:
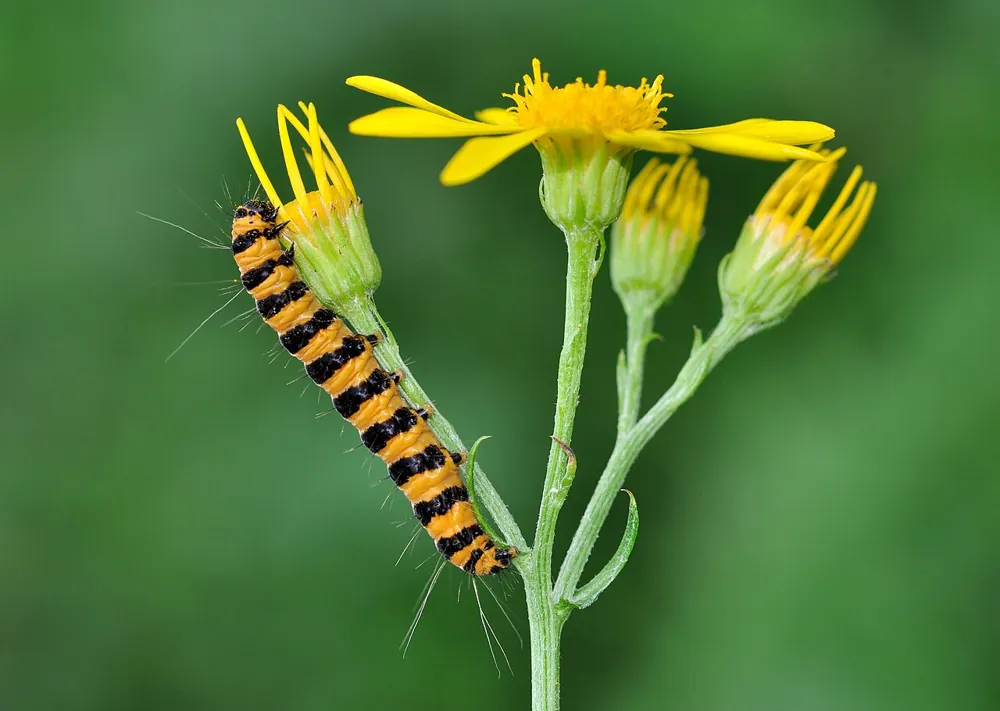
- У печінці хребетних і кишечнику неспеціалізованих комах третинні піролізидини окиснюються P450 до токсичних пірольних естерів. Гусениці ведмедиць (Arctiidae, наприклад Tyria jacobaeae — «зебра» на хрестовнику), метелики-данаїди й жуки-листоїди (Oreina) мають у гемолімфі флавінзалежну сенеціонін-N-оксигеназу (SNO), що миттєво перетворює поглинутий алкалоїд назад на нетоксичний полярний N-оксид. Його накопичують у покривах тіла для захисту від птахів і використовують як попередник чоловічих статевих феромонів (данаїдону, гідроксиданаїдалю).
- Ведмедиця Utetheisa ornatrix накопичує піролізидини з Crotalaria; міль болиголова Agonopterix alstroemeriana використовує токсичний коніїн з Conium maculatum і як захист від хижаків, і як хеморецепторний маркер для відкладання яєць.
11.6Антимікробний захист і алелопатія
Алкалоїди бувають фітоантиципінами (постійно присутні в покривних тканинах, корі, насінні) і фітоалексинами (синтез de novo різко зростає у відповідь на інфекцію чи поранення через жасмонатний і саліцилатний сигнали). Апорфіновий ліріоденін тюльпанового дерева захищає деревину від паразитичних грибів. Ізохінолінові й протоберберинові берберин, сангвінарин, хелеритрин, ятроризин, пальматин (Berberis, Mahonia, Chelidonium), піперин і хінолінові алкалоїди (диктамнін, скіміанін) концентруються в ризодермі, перидермі коренів і оболонках насіння: порушують проникність мембран, пригнічують проростання спор фітопатогенних грибів (Fusarium, Phytophthora, Alternaria) і розмноження бактерій (Agrobacterium, Erwinia, Xanthomonas), зокрема гальмують білок бактеріального поділу FtsZ. Індольний фітоалексин камалексин Arabidopsis синтезується з триптофану під час грибкової й бактеріальної атаки.
Потрапляючи в ґрунт з кореневими ексудатами чи вимиваючись дощем з опалого листя та оболонок насіння, алкалоїди діють як алелохімікати: берберин і сангвінарин, а також грамін ячменю суттєво гальмують проростання салату й крес-салату; капсаїцин гальмує ріст коренів бобів мунг; кофеїн з опалого листя кавових і чайних дерев пригнічує мітоз кореневих меристем проростків бур'янів навколо материнської рослини; алелопатично діють також хінолізидини люпину.
11.7Абіотичні стреси й резерв азоту
Посуха, засолення, УФ-B, екстремальні температури та важкі метали викликають окиснювальний вибух (ROS: H₂O₂, O₂•⁻, OH•). Рослини відповідають активацією генів біосинтезу алкалоїдів, які допомагають підтримувати іонний гомеостаз, гасити радикали й захищати мембрани [1].
- Засолення індукує експресію H6H й накопичення тропанових алкалоїдів у молодих листках Datura innoxia, підвищує синтез вінкристину в катарантусі та резерпіну в Rauvolfia tetraphylla.
- Посуха й температурний стрес збільшують морфінани в маку, хінолізидини в Lupinus angustifolius, камптотецин в Ophiorrhiza mungos.
- УФ-випромінювання стимулює TDC й накопичення індольних алкалоїдів (лохнерицину, аймаліцину) в катарантусі: вони поглинають жорсткий УФ-B (280–320 нм) і гасять синглетний кисень та пероксильні радикали, захищаючи ФС II і ДНК.
- Резерв азоту. За високого забезпечення нітратами й у бобових алкалоїди — метаболічно безпечне депо азоту у вакуолях і насінні (до 4–5 % сухої маси насіння люпину), що мобілізується під час проростання. Нікотинова кислота й тригонелін пов'язані з пулом коферментів НАД⁺ і НАДФ⁺.
12Практичне застосування
12.1Клінічна медицина та фармакологія
У сучасній клінічній практиці застосовують понад 90 індивідуальних природних алкалоїдів і сотні їхніх напівсинтетичних та синтетичних аналогів [8]. Здатність азоту приймати протон, а аміногруп — бути донорами водневих зв'язків забезпечує високу спорідненість алкалоїдів до активних центрів ферментів, іонних каналів і рецепторів людини.
Оберіть терапевтичний напрям — з'являться препарати, їхні джерела, механізми дії та структури. Значення активності (IC₅₀) — орієнтовні, з оглядових робіт [1].
Онкологія, неврологія й знеболення, кардіологія, пульмонологія, протиінфекційна терапія, метаболічні й інші напрями.
12.2Сільське господарство й селекція
- Експериментальна поліплоїдія. Колхіцин, руйнуючи нитки веретена без пригнічення реплікації хромосом («колхіциновий мітоз», C-мітоз), дозволяє штучно подвоювати хромосомний набір: так створюють тетраплоїдні сорти жита, цукрових буряків, конюшини, безнасінні кавуни, тритикале й перетворюють стерильні міжвидові гібриди на фертильні амфідиплоїди.
- Ботанічні пестициди. Сульфат нікотину (з махорки Nicotiana rustica) і сульфат анабазину (з Anabasis aphylla) були контактно-кишковими інсектицидами проти попелиць, трипсів, білокрилок і кліщів. Вивчення фармакофора нікотину й цитизину привело наприкінці XX ст. до створення неонікотиноїдів (імідаклоприд, тіаметоксам, ацетаміприд, клотіанідин), які селективно зв'язуються з нікотиновими рецепторами комах і значно слабше проникають крізь гематоенцефалічний бар'єр ссавців. Солі стрихніну застосовують як родентициди.
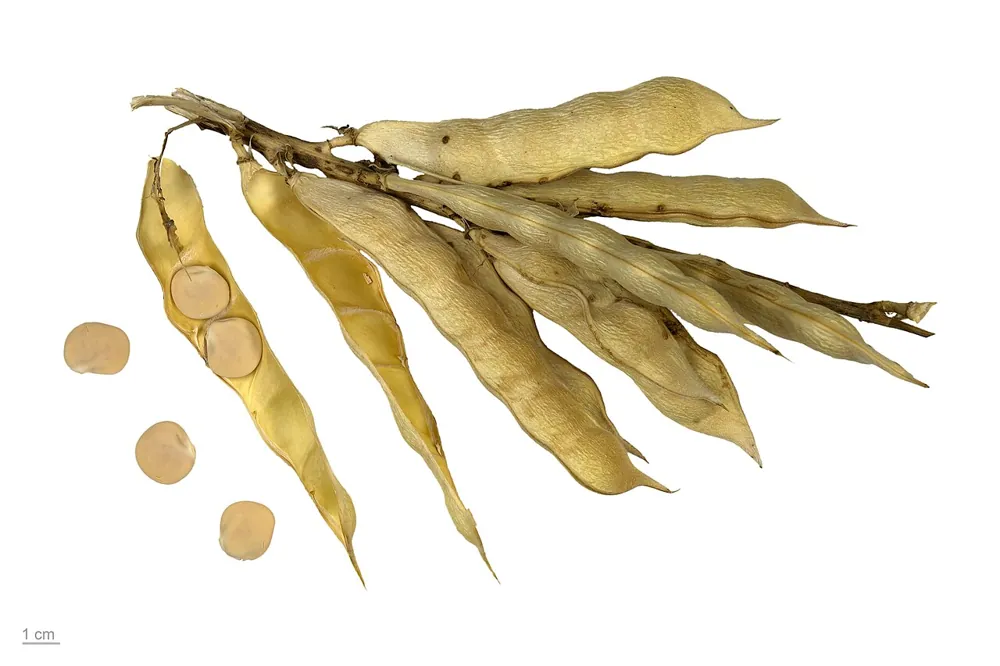
- «Солодкий» люпин. Дикі види люпину (Lupinus angustifolius, L. luteus, L. albus) містять у насінні 40–45 % якісного білка, але й 1,5–4 % гірких нейротоксичних хінолізидинів (лупанін, спартеїн) — і спричиняють отруєння худоби (люпиноз). Рецесивні мутації у генах біосинтезу (зокрема локус iucundus із транскрипційним фактором RAP2-7, що керує експресією LDC) дозволили вивести «солодкі» сорти з вмістом алкалоїдів менш ніж 0,02 % [8].
12.3Біотехнологія та синтетична біологія
Багато цінних алкалоїдів містяться в рослинах у мізерних кількостях (для 1 г вінкристину чи вінбластину потрібні сотні кілограмів сухого листя катарантуса), а їхній повний хімічний синтез надто складний. Тому розвивають біотехнологічні шляхи отримання [2, 25]:
- «Бородаті корені» (hairy roots). У недиференційованих калусних і суспензійних культурах гени біосинтезу тропанів чи піридинових алкалоїдів зазвичай репресовані (бракує диференційованого перициклу й ендодерми). Тому експланти трансформують ґрунтовою бактерією Agrobacterium rhizogenes: виникають генетично стабільні швидкорослі кореневі культури Atropa belladonna, Duboisia, Hyoscyamus, Rauvolfia, Coptis japonica, Catharanthus, які в біореакторах стабільно продукують скополамін, резерпін, аймалін, берберин. Біосинтез посилюють еліситори: метилжасмонат, саліцилова кислота, хітозан, УФ, солі срібла чи алюмінію.
- Гетерологічна реконструкція шляхів. Мультигенна експресія й CRISPR/Cas9 дозволили перенести рослинні каскади (понад 15–30 генів, зокрема P450, редуктази, метилтрансферази) у пекарські дріжджі Saccharomyces cerevisiae та листки Nicotiana benthamiana. Так отримано de novo ретикулін, тебаїн, морфін, носкапін, гіосціамін і скополамін, колхіцин та попередники вінбластину. Групою К. Смолке в Стенфорді (2015–2024) шляхи тебаїну, гідрокодону, гіосціаміну й скополаміну відтворено в дріжджах разом з інженерією вакуолярних транспортерів [25, 23, 15].
12.4Токсикологічна безпека
Біохімія алкалоїдів важлива й для безпеки харчових продуктів. Європейське агентство з безпеки харчових продуктів (EFSA) ввело жорсткий моніторинг контамінації чаїв, меду й злаків гепатотоксичними піролізидиновими алкалоїдами бур'янів родин Asteraceae й Boraginaceae та тропановими алкалоїдами насіння дурману [10].
13Контрольні питання
Чим алкалоїди відрізняються від первинних метаболітів?
Яка різниця між справжніми алкалоїдами, протоалкалоїдами та псевдоалкалоїдами?
Чому кофеїн — дуже слабка основа?
Чому морфін не можна виділяти надлишком сильного лугу?
Що таке вакуолярна іонна пастка?
Який фермент здійснює «committed step» біосинтезу тропанів і нікотину і чому це важливо?
Що відбувається в точці тропінону?
Яка реакція створює скелет бензилізохінолінових алкалоїдів?
Навіщо в маку фермент STORR?
Де синтезується нікотин, а де накопичується?
Чому піролізидинові алкалоїди переносяться у формі N-оксидів?
Чому реактив Майєра не осаджує кофеїн і колхіцин?
Як нікотин вбиває комах і які препарати створено за його зразком?
Як створили «солодкі» сорти люпину?
Чому для одержання вінкристину використовують біотехнологію?
14Література
- Bhambhani S., Kondhare K.R., Giri A.P. (2021) Diversity in Chemical Structures and Biological Properties of Plant Alkaloids. Molecules 26: 3374. doi:10.3390/molecules26113374
- Dixon R.A., Dickinson A.J. (2024) A century of studying plant secondary metabolism—From “what?” to “where, how, and why?”. Plant Physiology 195: 48-66. doi:10.1093/plphys/kiad596
- Dey P., Kundu A., Kumar A. et al. (2020) Analysis of alkaloids (indole alkaloids, isoquinoline alkaloids, tropane alkaloids). Recent Advances in Natural Products Analysis: 505-567. doi:10.1016/b978-0-12-816455-6.00015-9
- Aniszewski T. (2015) Alkaloids: Chemistry, Biology, Ecological Role. 2nd ed. Elsevier, Amsterdam.
- Dewick P. M. (2009) Medicinal Natural Products: A Biosynthetic Approach. 3rd ed. Wiley, Chichester.
- Lichman B.R. (2021) The scaffold-forming steps of plant alkaloid biosynthesis. Natural Product Reports 38: 103-129. doi:10.1039/d0np00031k
- Kutchan T.M. (1995) Alkaloid Biosynthesis: The Basis for Metabolic Engineering of Medicinal Plants. The Plant Cell 7: 1059. doi:10.2307/3870057
- Aryal B., Raut B.K., Bhattarai S. et al. (2022) Potential Therapeutic Applications of Plant-Derived Alkaloids against Inflammatory and Neurodegenerative Diseases. Evidence-Based Complementary and Alternative Medicine 2022: 1-18. doi:10.1155/2022/7299778
- Kohnen-Johannsen K.L., Kayser O. (2019) Tropane Alkaloids: Chemistry, Pharmacology, Biosynthesis and Production. Molecules 24: 796. doi:10.3390/molecules24040796
- Schramm S., Köhler N., Rozhon W. (2019) Pyrrolizidine Alkaloids: Biosynthesis, Biological Activities and Occurrence in Crop Plants. Molecules 24: 498. doi:10.3390/molecules24030498
- Wink M. (1987) Chemical ecology of quinolizidine alkaloids. In: Waller G. R. (ed.) Allelochemicals: Role in Agriculture and Forestry. ACS Symposium Series 330: 524–533. doi:10.1021/bk-1987-0330.ch047
- Hagel J.M., Facchini P.J. (2013) Benzylisoquinoline Alkaloid Metabolism: A Century of Discovery and a Brave New World. Plant and Cell Physiology 54: 647-672. doi:10.1093/pcp/pct020
- Onoyovwe A., Hagel J.M., Chen X. et al. (2013) Morphine Biosynthesis in Opium Poppy Involves Two Cell Types: Sieve Elements and Laticifers. The Plant Cell 25: 4110-4122. doi:10.1105/tpc.113.115113
- Winzer T., Gazda V., He Z. et al. (2012) A Papaver somniferum 10-gene cluster for synthesis of the anticancer alkaloid noscapine. Science 336: 1704–1708.
- Qu Y., Easson M.L.A.E., Froese J. et al. (2015) Completion of the seven-step pathway from tabersonine to the anticancer drug precursor vindoline and its assembly in yeast. Proceedings of the National Academy of Sciences 112: 6224-6229. doi:10.1073/pnas.1501821112
- Ashihara H., Sano H., Crozier A. (2008) Caffeine and related purine alkaloids: Biosynthesis, catabolism, function and genetic engineering. Phytochemistry 69: 841-856. doi:10.1016/j.phytochem.2007.10.029
- Wink M., Roberts M.F. (1998) Compartmentation of Alkaloid Synthesis, Transport, and Storage. In: Roberts M.F., Wink M. (eds) Alkaloids: Biochemistry, Ecology, and Medicinal Applications. Plenum Press, New York: 239–262. doi:10.1007/978-1-4757-2905-4_10
- Ziegler J., Facchini P.J. (2008) Alkaloid Biosynthesis: Metabolism and Trafficking. Annual Review of Plant Biology 59: 735-769. doi:10.1146/annurev.arplant.59.032607.092730
- Facchini P. J. (2001) Alkaloid biosynthesis in plants: biochemistry, cell biology, molecular regulation, and metabolic engineering applications. Annual Review of Plant Physiology and Plant Molecular Biology 52: 29–66. doi:10.1146/annurev.arplant.52.1.29
- Hartmann T. (1999) Chemical ecology of pyrrolizidine alkaloids. Planta 207: 483-495. doi:10.1007/s004250050508
- Nowak M., Selmar D. (2016) Cellular distribution of alkaloids and their translocation via phloem and xylem: the importance of compartment <scp>pH</scp>. Plant Biology 18: 879-882. doi:10.1111/plb.12504
- Shitan N., Yazaki K. (2007) Accumulation and Membrane Transport of Plant Alkaloids. Current Pharmaceutical Biotechnology 8: 244-252. doi:10.2174/138920107781387429
- Srinivasan P., Smolke C.D. (2021) Engineering cellular metabolite transport for biosynthesis of computationally predicted tropane alkaloid derivatives in yeast. Proceedings of the National Academy of Sciences 118: e2104460118. doi:10.1073/pnas.2104460118
- Steppuhn A., Gase K., Krock B. et al. (2004) Nicotine’s Defensive Function in Nature. PLoS Biology 2: e217. doi:10.1371/journal.pbio.0020217
- Galanie S., Thodey K., Trenchard I.J. et al. (2015) Complete biosynthesis of opioids in yeast. Science 349: 1095-1100. doi:10.1126/science.aac9373
Наведено лише джерела, чиє існування, автори, рік і журнал перевірені за відкритими бібліографічними базами. Підручники й монографії (Анішевський, Дьюїк, Вінк, Гессе) додано для довідки.